

如果我从物种参考而不是创始系设计,我可能在订购引导之前就错过了目标。
对于生物工艺工程师、细胞培养科学家和培养肉类研发团队来说,核心点很简单:编辑成功取决于我面前的确切细胞系,而不是标签上的物种名称。 . 在本文中,我将决策路径缩小到六个检查:基因组组装质量、倍性、等位基因变异、PAM访问、修复偏差和供体设计。. 这对两种编辑类别都很重要:敲除可以容忍更多的修复变异,而敲入则更依赖于位点序列和供体匹配。
几个实用点立即显现:
- 首先测序创始系, 然后从该序列设计引导。
- 在宣布敲除完成之前,计算位点的所有等位基因。
- 检查每个等位基因上的PAM访问, 而不仅仅是在参考基因组上。
- 预期修复中的物种差异, 在牛和猪的体细胞系中,NHEJ通常占主导地位。
- 将供体模板与创始单倍型匹配以进行敲入。
- 如果漂移可能影响引导结合或编辑读数,重新测序传代细胞系。
文章中的一个结果使这一过程立即具有相关性:据报道,NF2敲除可使猪和牛的肌母细胞和ADSCs的倍增时间减少5%–100%,同时支持悬浮适应. 但这种结果并不意味着一个 CRISPR计划可以在不重新工作的情况下适用于牛、猪、鸟类和鱼类。
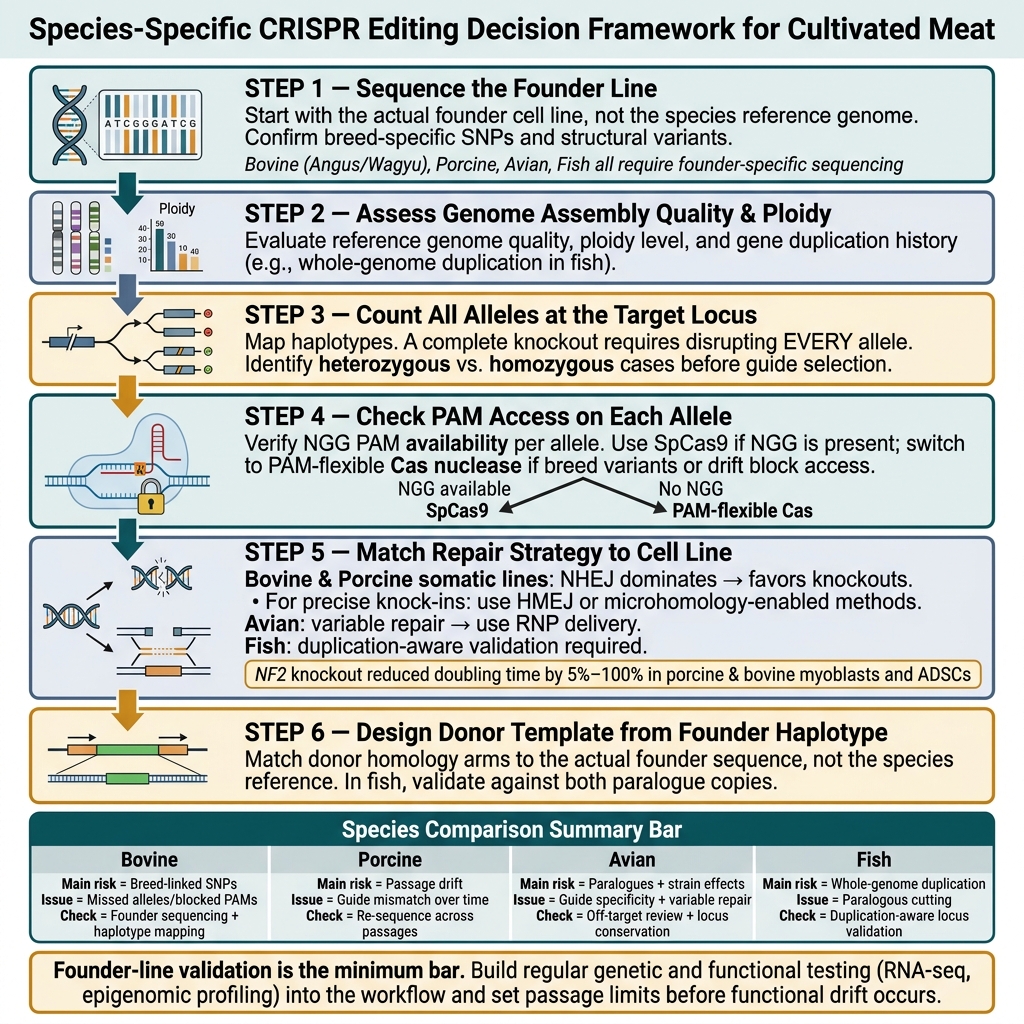
特定物种的CRISPR编辑流程用于培养肉
快速比较
| 物种 | 主要设计风险 | 主要编辑问题 | 我首先会检查什么 |
|---|---|---|---|
| 牛 | 品种相关的SNPs和结构变异 | 遗漏的等位基因和阻塞的PAMs | 创始系测序和单倍型图谱 |
| 猪 | 传代漂移 | 导向错配随时间变化 | 跨传代重测序 |
| 禽类 | 旁系同源和品系效应 | 导向特异性和可变修复 | 位点保守性和脱靶评估 |
| 鱼类 | 全基因组复制 | 旁系切割和难以读取的结果 | 考虑复制的位点验证 |
因此,如果我想要一个干净的培养肉细胞编辑计划,我会从创始基因组开始,验证等位基因结构,选择可以到达位点的核酸酶,然后再决定细胞系更适合敲除还是精确插入。
sbb-itb-ffee270
参考基因组、多倍性和基因重复设定了起始约束
从创始系序列, 开始,而不是物种参考。这听起来像是一个小区别,但实际上它改变了整个编辑计划。
等位基因计数和局部序列变异告诉你敲除是否可以编辑。选择引导之前先计数等位基因:功能性敲除意味着破坏目标位点的每个等位基因, 因此在选择引导之前需要区分杂合子和纯合子情况[1]. 这一步在你甚至考虑PAM可用性之前就缩小了引导搜索空间。
牛和猪基因组:杂合性、泛基因组和与品种相关的结构变异
在牛中,与品种相关的变异是一个严重的限制。安格斯和和牛系可以携带不同的SNP模式和结构变异,因此一种物种的参考基因组可能会遗漏创始池中实际存在的序列。 Ivy Farm Technologies通过测序创始系并确认安格斯和和牛池中的编辑来解决这个问题 [1].
对于猪系, 最安全的方法是直接测序创始系,然后在传代中重新测序。系特异性变异和培养中的漂移都可能破坏引导设计,并使后期编辑验证变得复杂[1] [4].
一旦创始序列得到确认,下一个检查很简单:目标位点是否有可用的PAM?
鸟类和鱼类基因组:旁系同源基因、选择性扫荡和全基因组复制
在鸟类中,与菌株相关的选择性扫荡可以去除目标位点的序列多样性。除此之外,从较早的复制事件中继承的旁系同源基因副本意味着在设计推进之前必须检查引导特异性。
鱼类增加了另一层复杂性。全基因组复制在许多基因组中留下了保留的重复基因副本,因此如果不考虑这种复制历史,一个针对某个副本的引导可能也会切割其他位点。
何时在设计引导之前重新测序创始细胞系
当起始材料是异质的或细胞系在连续培养中度过了一段时间时,需要重新测序。全基因组或外显子组测序提供了最清晰的视图,供体同源臂需要与实际创始序列匹配,然后才能进行任何敲入程序 [2] [4].
| 物种 | 主要基因组挑战 | 推荐测序行动 |
|---|---|---|
| 牛(安格斯/和牛) | 品种特异性SNP和结构变异 | 创始系的靶向测序或全基因组测序以确认gRNA匹配[1] |
| 猪成肌细胞 | 高SNP密度和快速倍增漂移 | 使用NGS在传代中重新测序[1] [4] |
| 鱼类/海洋物种 | 全基因组复制和保留的重复拷贝 | 创始系的从头组装或深度重测序[2] |
在创始序列确定后,等位基因变异和PAM可用性决定可靶向的内容。简单来说,等位基因特异性错配和PAM频率决定了哪些位点可以被切割。
等位基因变异和PAM的可用性决定了哪些编辑是实际可定位的
一旦创始序列固定,接下来的问题很简单:每个等位基因是否仍然可以在该位点编辑,并且是否有可用的PAM? 实际上,指导设计归结为两个检查:单倍型保守性和PAM可访问性。
避免在牛、猪、鸡和鱼中进行等位基因特异性切割
在20个核苷酸原间隔区的任何地方或正好在PAM处的多态性都可能阻止一个等位基因被切割。这可能导致混合细胞池,其中部分切割看起来像编辑效率低下,而实际问题是在切割过程中等位基因丢失。
解决方法很简单。在创始系中测序目标位点,绘制单倍型图谱,并且仅在所有已识别等位基因中完全保守的区域锁定引导。然后在延长传代后重新检查该位点。
如果位点在单倍型中不保守,PAM 的选择无关紧要。
当 SpCas9 足够时,以及何时需要 PAM 灵活的核酸酶
如果存在 NGG PAM,SpCas9 是默认选择。如果不存在,您要么重新设计目标,要么转向 PAM 灵活的 Cas 核酸酶。该决定应来自创始序列,而不是参考基因组。
物种比较:目标性和核酸酶适配一览
| 物种 | 常见编辑细胞类型 | 目标性限制 | 最佳核酸酶适配 |
|---|---|---|---|
| 牛 | 肌母细胞、ADSCs、iPSCs | 品种相关SNPs (e.g. , 安格斯 vs.和牛)[1] | 当NGG可用时使用SpCas9;当品种变异阻碍访问时使用PAM灵活的Cas |
| 猪 | 成肌细胞,成纤维细胞 | 跨代快速培养漂移[1] | 使用SpCas9;如果漂移改变了PAM位点,则切换到PAM灵活的Cas |
| 禽类 | 卫星细胞,胚胎干细胞 | 连续培养中的遗传漂移[4] | 当旁系重叠限制SpCas9特异性时,优先使用PAM灵活的Cas |
| 鱼类 | 成肌细胞(鳟鱼,鲤鱼,鲭鱼) | 全基因组复制和旁系同源物[3] | 使用PAM灵活的Cas来导航重复的基因座 |
一旦位点可靶向,修复偏差决定编辑是成为敲除还是敲入。
修复途径偏差和供体设计驱动敲除和敲入结果
即使引导可以干净地切割,如果细胞以错误的方式修复断裂,也可能错失目标。修复偏差通常决定了您是得到敲除、混合插入缺失(indel)谱还是精确敲入。在培养肉类工作中,肌母细胞和脂肪来源的干细胞(ADSCs)等体细胞系是日常材料,这种偏差可以决定编辑程序是前进还是停滞。
NHEJ, HDR 和 HMEJ 在哺乳动物、禽类和鱼类细胞系中的偏差
切割后,主要问题是哪个修复途径在生产细胞系中占主导地位。在牛和猪的体细胞系中,非同源末端连接(NHEJ)通常是主要途径。这使得简单的敲除比精确插入更容易实现,尤其是在目标是破坏基因以减少倍增时间或帮助悬浮适应时。Ivy Farm Technologies 直接展示了这一点:在猪和牛的肌母细胞和ADSCs中,CRISPR/Cas9 敲除内源性NF2基因减少了倍增时间,并支持悬浮适应,这是 扩大培养肉的关键步骤 [1].
同源定向修复(HDR)可以在这些细胞系中工作,但除非系统经过仔细调整,否则效率通常较低。当需要精确插入时,同源介导的末端连接(HMEJ)或其他微同源性方法可以提供更好的整合率。关键点很简单:在实际生产细胞类型中测试修复行为。传代和悬浮适应可以随着时间的推移改变编辑结果[1][4].
鸟类细胞可以很好地编辑,但修复结果在不同运行之间往往变化较大。鱼类细胞系也常常编辑良好,但由于同源基因可能隐藏真实编辑,因此需要进行重复感知验证[3].
按物种设计供体模板:格式和等位基因匹配
对于敲入,供体设计应遵循修复路径,而不仅仅是参考基因组。将供体与创始单倍型匹配,而不是物种参考。在杂合的牛和猪系中,仅从参考序列构建的供体可能会遗漏一个等位基因[1].
在鱼类中,重复感知设计是必须的,因为同源基因可能会使编辑的读数复杂化。检查引导和供体是否与您想要更改的确切位点匹配,而不是假设一个参考序列能说明全部情况。
按物种划分的修复偏差和敲入设计:比较表格
下表将这些修复差异转化为物种级别的设计选择。
| 物种 | 主要修复倾向 | 精确插入的主要挑战 | 首选供体或修复策略 | 关键优化杠杆 |
|---|---|---|---|---|
| 牛 | NHEJ | 体细胞肌母细胞和ADSCs中HDR效率低 | dsDNA或ssODN;HMEJ用于精确插入 | 创始单倍型匹配 |
| 猪 | NHEJ | 等位基因特异性匹配;体外寿命有限 | 根据编辑目标选择等位基因匹配供体或敲除 | 等位基因匹配供体设计 |
| 禽类 | 机制依赖 | 修复结果可变 | RNP递送用于控制修复 | RNP递送用于更严格的时间控制 |
| 鱼类 | 高效编辑,途径可变 | 全基因组重复;旁系干扰 | 重复感知的引导和供体设计 | 验证两个旁系副本 |
结论:用于培养肉类的物种特异性CRISPR编辑的决策框架
实际决策规则很简单:测序创始系,确认位点结构,检查等位基因变异,选择PAM兼容的核酸酶,然后将修复策略与细胞系匹配.
该工作流程在物种层面上有效,但创始系变异仍会影响结果。简单来说,物种层面的默认设置不能可靠地从一个创始系传递到另一个。创始系验证是最低标准 [1].
还有一个团队不能轻视的点。连续培养可能会随着时间的推移引入遗传漂移,这意味着在早期传代中有效的编辑计划可能在后期表现不同。因此,团队应在工作流程中定期进行遗传和功能测试,包括RNA测序和表观基因组分析,并在功能开始漂移之前设定传代限制[4].
研发、生产和采购团队的关键要点&
对于将此工作流程付诸实践的团队,优先事项非常明确。
- 研发团队&应尽早排序并从创始人线设计。
- 生产团队应将供体设计与细胞系的修复偏差相匹配。
常见问题解答
为什么物种参考基因组不够?
对于培养肉基因编辑来说,物种参考基因组是不够的。它为您提供了一般地图,但不是您正在处理的细胞系的实际生物学。
这个差距很重要。在农业物种中,关键的调控元素如启动子、增强子和非翻译区仍然常常未被充分表征。因此,即使参考基因组在纸面上看起来完整,它也可能无法告诉您特定位点在您的细胞中如何表现。
它还遗漏了直接影响编辑结果的细胞系特异性差异,包括倍性、等位基因模式和修复途径偏差。没有这些信息,研究人员无法可靠地预测编辑结果或调整特性,例如悬浮生长和高效增殖。
我如何知道每个等位基因是否都被实际编辑过?
要确认在您的培养肉细胞系中每个等位基因都被编辑过,请定期进行基因监测。全基因组测序为您提供每个基因座序列变化的广泛视图,这有助于您检查编辑是否在预期位置发生,以及在此过程中是否有其他变化。
外显子测序然后可以帮助确定合子性,显示编辑是纯合子 还是杂合子 .
什么时候应该选择敲除而不是敲入?
当您的主要目标是关闭一个基因并改善细胞特性时,选择敲除。在培养肉中,团队通常使用此方法来支持更快的生长、不朽化或通过改变细胞代谢来降低投入需求。
当您需要添加新的遗传信息或增强有用蛋白质的表达时,选择敲入。简单来说,选择归结为:您是在消除障碍,还是在添加新功能?


