

หากฉันออกแบบจากการอ้างอิงสายพันธุ์แทนที่จะเป็นสายผู้ก่อตั้ง ฉันอาจพลาดเป้าหมายก่อนที่จะสั่งไกด์ด้วยซ้ำ
สำหรับวิศวกรกระบวนการชีวภาพ นักวิทยาศาสตร์เพาะเลี้ยงเซลล์ และทีมวิจัยและพัฒนาเนื้อสัตว์เพาะเลี้ยง&จุดสำคัญคือ: ความสำเร็จในการแก้ไขขึ้นอยู่กับ สายเซลล์ที่แน่นอน ที่อยู่ตรงหน้าฉัน ไม่ใช่ชื่อสายพันธุ์บนฉลาก. ในบทความนี้ ฉันจำกัดเส้นทางการตัดสินใจให้เหลือหกข้อ: คุณภาพการประกอบจีโนม, พลอยดี, ความแปรปรวนของอัลลีล, การเข้าถึง PAM, อคติการซ่อมแซม, และการออกแบบผู้บริจาค. ซึ่งมีความสำคัญสำหรับทั้งสองคลาสการแก้ไข: การลบสามารถทนต่อความแปรปรวนในการซ่อมแซมได้มากกว่า ในขณะที่การแทรกขึ้นอยู่กับลำดับตำแหน่งและการจับคู่ผู้บริจาคมากกว่า
มีจุดปฏิบัติที่โดดเด่นอยู่ไม่กี่ข้อ:
- จัดลำดับสายผู้ก่อตั้งก่อน, แล้วออกแบบไกด์จากลำดับนั้น
- นับอัลลีลทั้งหมดที่ตำแหน่ง ก่อนที่จะเรียกการลบว่าเสร็จสมบูรณ์
- ตรวจสอบการเข้าถึง PAM ในแต่ละอัลลีล, ไม่ใช่แค่ในจีโนมอ้างอิงเท่านั้น.
- คาดหวังความแตกต่างของสายพันธุ์ในการซ่อมแซม, โดยที่ NHEJ มักจะมีบทบาทสำคัญในเซลล์โซมาติกของโคและสุกร.
- จับคู่แม่แบบผู้บริจาคกับแฮพลอไทป์ผู้ก่อตั้ง สำหรับการเคาะเข้า.
- ทำการเรียงลำดับใหม่ในสายที่ผ่านการเพาะเลี้ยง หากการเปลี่ยนแปลงอาจส่งผลต่อการจับคู่ไกด์หรือการอ่านผลการแก้ไข.
ผลลัพธ์หนึ่งในบทความนี้ให้ความเกี่ยวข้องกับกระบวนการทันที: การเคาะออก NF2 รายงานว่าลดเวลาการเพิ่มจำนวนลง 5%–100% ในไมโอบลาสต์และ ADSCs ของสุกรและโค ในขณะเดียวกันก็สนับสนุนการปรับตัวในสภาวะการแขวนลอย. แต่ผลลัพธ์ประเภทนั้นไม่ได้หมายความว่าแผน CRISPR หนึ่งแผนสามารถใช้ได้กับโค สุกร นก และปลา โดยไม่ต้องทำการปรับปรุงใหม่.
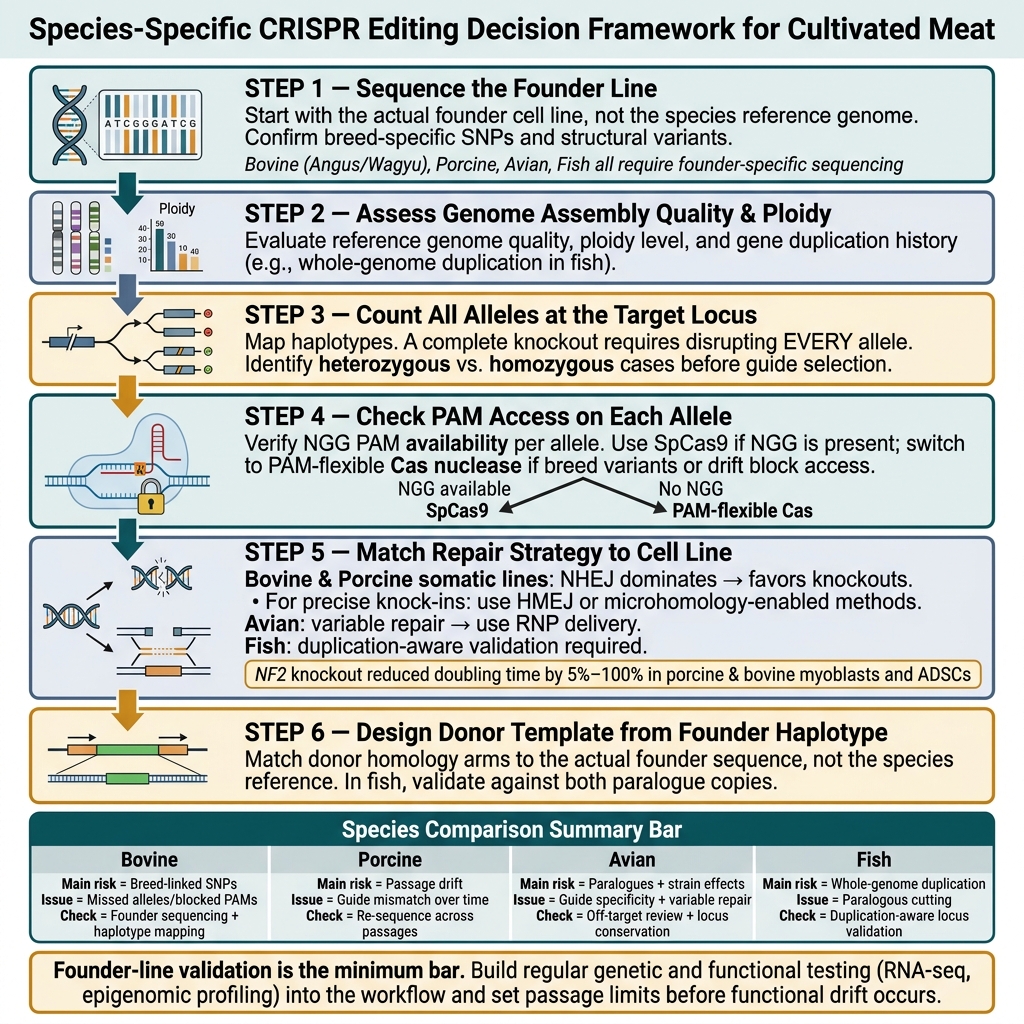
เวิร์กโฟลว์การแก้ไข CRISPR เฉพาะสายพันธุ์สำหรับเนื้อสัตว์เพาะเลี้ยง
การเปรียบเทียบอย่างรวดเร็ว
| สายพันธุ์ | ความเสี่ยงหลักในการออกแบบ | ปัญหาหลักในการแก้ไข | สิ่งที่ฉันจะตรวจสอบก่อน |
|---|---|---|---|
| โค | SNPs ที่เชื่อมโยงกับสายพันธุ์และความแปรปรวนของโครงสร้าง | อัลลีลที่พลาดและ PAMs ที่ถูกบล็อก | การจัดลำดับสายผู้ก่อตั้งและการทำแผนที่ฮาโพลไทป์ |
| สุกร | การลื่นไถลข้ามพาสเซจ | การไม่ตรงกันของไกด์เมื่อเวลาผ่านไป | การจัดลำดับใหม่ข้ามพาสเซจ |
| นก | พาราล็อกและผลกระทบของสายพันธุ์ | ความเฉพาะเจาะจงของไกด์และการซ่อมแซมที่แปรปรวน | การอนุรักษ์ตำแหน่งและการตรวจสอบนอกเป้าหมาย |
| ปลา | การทำซ้ำทั้งจีโนม | การตัดพาราล็อกและผลลัพธ์ที่อ่านยาก | การตรวจสอบตำแหน่งที่คำนึงถึงการทำซ้ำ |
ดังนั้น หากฉันต้องการแผนการแก้ไขที่ชัดเจนสำหรับเซลล์เนื้อสัตว์เพาะเลี้ยง ฉันเริ่มต้นด้วยจีโนมผู้ก่อตั้ง ตรวจสอบโครงสร้างอัลลีล เลือกนิวคลีเอสที่สามารถเข้าถึงไซต์ได้ และจากนั้นจึงตัดสินใจว่าเซลล์ไลน์นั้นเหมาะสมกว่าสำหรับการน็อคเอาท์หรือการแทรกที่แม่นยำ
sbb-itb-ffee270
จีโนมอ้างอิง, พลอยดี และการทำซ้ำของยีนกำหนดข้อจำกัดเริ่มต้น
เริ่มต้นด้วย ลำดับสายพันธุ์ผู้ก่อตั้ง, ไม่ใช่จีโนมอ้างอิงของสายพันธุ์ นั่นฟังดูเหมือนความแตกต่างเล็กน้อย แต่ในทางปฏิบัติมันเปลี่ยนแผนการแก้ไขทั้งหมด
จำนวนแอลลีลและความแปรผันของลำดับท้องถิ่นบอกคุณว่าการน็อคเอาท์สามารถแก้ไขได้ในตอนแรกหรือไม่ นับแอลลีลก่อนที่คุณจะเลือกไกด์: การน็อคเอาท์ที่ใช้งานได้หมายถึง การทำลายแอลลีลทุกตัวที่ตำแหน่งเป้าหมาย, ดังนั้นคุณต้องแยกกรณีเฮเทอโรไซกัสออกจากกรณีโฮโมไซกัสก่อนการเลือกไกด์ [1]. ขั้นตอนนั้นจะลดพื้นที่ค้นหาไกด์ ก่อนที่ คุณจะไปถึงความพร้อมใช้งานของ PAM.
จีโนมของโคและสุกร: เฮเทอโรไซกัส, พันจีโนม และความแปรผันของโครงสร้างที่เชื่อมโยงกับสายพันธุ์
ในโค ความแปรผันที่เชื่อมโยงกับสายพันธุ์เป็นข้อจำกัดที่ร้ายแรง. สายพันธุ์ Angus และ Wagyu สามารถมีรูปแบบ SNP และโครงสร้างที่แตกต่างกันได้ ดังนั้นจีโนมอ้างอิงของสายพันธุ์หนึ่งอาจพลาดลำดับที่มีอยู่จริงในกลุ่มผู้ก่อตั้ง Ivy Farm Technologies จัดการกับปัญหานี้โดยการจัดลำดับสายพันธุ์ผู้ก่อตั้งและยืนยันการแก้ไขในกลุ่ม Angus และ Wagyu [1].
สำหรับ สายพันธุ์สุกร, วิธีที่ปลอดภัยที่สุดคือการจัดลำดับสายพันธุ์ผู้ก่อตั้งโดยตรง จากนั้นทำการจัดลำดับใหม่ในแต่ละช่วง การเปลี่ยนแปลงเฉพาะสายพันธุ์และการเปลี่ยนแปลงในวัฒนธรรมสามารถรบกวนการออกแบบไกด์และทำให้การยืนยันการแก้ไขในภายหลังยุ่งยาก [1] [4].
เมื่อยืนยันลำดับผู้ก่อตั้งแล้ว การตรวจสอบถัดไปก็ง่าย: ไซต์เป้าหมายมี PAM ที่ใช้งานได้หรือไม่?
จีโนมของนกและปลา: paralogues, selective sweeps และการทำซ้ำทั้งจีโนม
ในสายพันธุ์นก การกวาดล้างที่เชื่อมโยงกับสายพันธุ์สามารถลบความหลากหลายของลำดับที่ตำแหน่งเป้าหมาย นอกจากนี้ สำเนา paralogue ที่สืบทอดมาจากเหตุการณ์การทำซ้ำที่เก่ากว่าหมายความว่าต้องตรวจสอบความเฉพาะเจาะจงของไกด์ก่อนที่จะดำเนินการออกแบบต่อไป
ปลาจะเพิ่มอีกชั้นหนึ่ง การทำซ้ำทั้งจีโนมทำให้มีสำเนายีนที่ซ้ำกันที่ยังคงอยู่ในหลายจีโนม ดังนั้นไกด์ที่มุ่งเป้าไปที่สำเนาหนึ่งอาจตัดตำแหน่งอื่นด้วย เว้นแต่การคัดกรองนอกเป้าหมายจะคำนึงถึงประวัติการทำซ้ำนี้
เมื่อใดควรทำการเรียงลำดับใหม่ของสายเซลล์ผู้ก่อตั้งก่อนออกแบบไกด์
การเรียงลำดับใหม่จำเป็นเมื่อวัสดุเริ่มต้นมีความหลากหลายหรือเมื่อสายเซลล์ใช้เวลาในวัฒนธรรมต่อเนื่องการหาลำดับจีโนมหรือเอ็กโซมทั้งหมดให้ภาพที่ชัดเจนที่สุด และแขนโฮโมโลยีของผู้บริจาคจำเป็นต้องตรงกับ ลำดับผู้ก่อตั้งที่แท้จริง ก่อนที่โปรแกรมการเคาะเข้าใด ๆ [2] [4].
| ชนิดพันธุ์ | ความท้าทายทางจีโนมหลัก | การดำเนินการจัดลำดับที่แนะนำ |
|---|---|---|
| โค (แองกัส/วากิว) | SNPs เฉพาะสายพันธุ์และการเปลี่ยนแปลงโครงสร้าง | การจัดลำดับเป้าหมายหรือ WGS ของสายพันธุ์ผู้ก่อตั้งเพื่อยืนยันการจับคู่ gRNA [1] |
| ไมโอบลาสต์ของสุกร | ความหนาแน่นของ SNP สูงและการล่องลอยที่เพิ่มขึ้นอย่างรวดเร็ว | จัดลำดับใหม่ในช่วงการเพาะเลี้ยงด้วย NGS [1] [4] |
| ปลา / สัตว์น้ำ | การทำซ้ำทั้งจีโนมและสำเนาที่ซ้ำกันที่ยังคงอยู่ | การประกอบ de novo หรือการจัดลำดับซ้ำลึกของสายพันธุ์ผู้ก่อตั้ง [2] |
หลังจากที่ลำดับผู้ก่อตั้งถูกล็อคลง ความแปรปรวนของอัลลีลและความพร้อมใช้งานของ PAM จะตัดสินว่าอะไรที่สามารถกำหนดเป้าหมายได้ในแง่ที่ง่ายที่สุด ความไม่ตรงกันเฉพาะอัลลีลและความถี่ของ PAM กำหนดว่าลำดับใดสามารถถูกตัดได้บ้าง
ความแปรผันของอัลลีลและความพร้อมใช้งานของ PAM กำหนดว่าการแก้ไขใดที่สามารถทำได้จริง
เมื่อกำหนดลำดับผู้ก่อตั้งแล้ว คำถามต่อไปคือ: อัลลีลทุกตัวสามารถถูกแก้ไขที่ไซต์นั้นได้หรือไม่ และมี PAM ที่ใช้งานได้หรือไม่? ในทางปฏิบัติ การออกแบบไกด์ขึ้นอยู่กับการตรวจสอบสองอย่าง: การอนุรักษ์ฮาพโลไทป์และการเข้าถึง PAM
หลีกเลี่ยงการตัดเฉพาะอัลลีลในวัว หมู ไก่ และปลา
การมีโพลีมอร์ฟิซึมที่ใดก็ได้ในโปรโตสเปเซอร์ 20 นิวคลีโอไทด์ หรือที่ PAM สามารถหยุดการตัดอัลลีลหนึ่งได้ ซึ่งอาจทำให้คุณมีเซลล์ผสมที่การตัดบางส่วนดูเหมือนประสิทธิภาพการแก้ไขที่ไม่ดี เมื่อปัญหาจริงคือการหลุดของอัลลีลระหว่างการตัด
การแก้ไขนั้นตรงไปตรงมาจัดลำดับตำแหน่งเป้าหมายในสายพันธุ์ผู้ก่อตั้ง, ทำแผนที่ฮาโพลไทป์, และล็อคไกด์เฉพาะในพื้นที่ที่อนุรักษ์ไว้อย่างสมบูรณ์ในอัลลีลที่ระบุทั้งหมด จากนั้นตรวจสอบตำแหน่งอีกครั้งหลังจากการผ่านหลายรอบ
หากไซต์ไม่ได้รับการอนุรักษ์ในฮาโพลไทป์, การเลือก PAM ไม่มีความสำคัญ
เมื่อ SpCas9 เพียงพอและเมื่อจำเป็นต้องใช้เอนไซม์นิวเคลสที่ยืดหยุ่นต่อ PAM
หากมี NGG PAM, SpCas9 เป็นตัวเลือกเริ่มต้น หากไม่มี คุณต้องออกแบบเป้าหมายใหม่หรือย้ายไปยังเอนไซม์นิวเคลสที่ยืดหยุ่นต่อ PAM การตัดสินใจนั้นควรมาจากลำดับผู้ก่อตั้ง ไม่ใช่จีโนมอ้างอิง
การเปรียบเทียบสายพันธุ์: การกำหนดเป้าหมายและความเหมาะสมของนิวคลีเอสอย่างรวดเร็ว
| สายพันธุ์ | ประเภทเซลล์ทั่วไปสำหรับการแก้ไข | ข้อจำกัดในการกำหนดเป้าหมาย | ความเหมาะสมของนิวคลีเอสที่ดีที่สุด |
|---|---|---|---|
| โค | ไมโอบลาสต์, ADSCs, iPSCs | SNPs ที่เชื่อมโยงกับสายพันธุ์ (e.g. , แองกัส vs.Wagyu) [1] | SpCas9 ที่ NGG สามารถใช้ได้; PAM-flexible Cas ที่พันธุ์ต่างๆ ขัดขวางการเข้าถึง |
| สุกร | ไมโอบลาสต์, ไฟโบรบลาสต์ | การเปลี่ยนแปลงวัฒนธรรมอย่างรวดเร็วในแต่ละช่วง[1] | SpCas9; เปลี่ยนไปใช้ PAM-flexible Cas หากการเปลี่ยนแปลงส่งผลต่อไซต์ PAM |
| นก | เซลล์ดาวเทียม, เซลล์ต้นกำเนิดจากตัวอ่อน | การเปลี่ยนแปลงทางพันธุกรรมในวัฒนธรรมต่อเนื่อง[4] | PAM-flexible Cas ที่ต้องการเมื่อการทับซ้อนของ paralogue จำกัดความเฉพาะเจาะจงของ SpCas9 |
| ปลา | ไมโอบลาสต์ (ปลาเทราท์, ปลาคาร์พ, ปลาแมคเคอเรล) | การทำซ้ำทั้งจีโนมและ paralogues[3] | PAM-flexible Cas เพื่อสำรวจตำแหน่งที่ซ้ำกัน |
เมื่อไซต์สามารถกำหนดเป้าหมายได้, อคติการซ่อมแซมจะกำหนดว่าการแก้ไขจะกลายเป็นการลบหรือการแทรก.
อคติของเส้นทางการซ่อมแซมและการออกแบบผู้บริจาคมีผลต่อผลลัพธ์ของการลบและการแทรก
ไกด์สามารถตัดได้อย่างสะอาดและยังคงพลาดเป้าหมายหากเซลล์ซ่อมแซมการแตกหักในทางที่ผิด อคติในการซ่อมแซมมักจะตัดสินใจว่าคุณจะจบลงด้วยการลบโปรไฟล์ indel แบบผสมหรือการแทรกที่แม่นยำ ในงานเนื้อสัตว์ที่เพาะเลี้ยงซึ่งเส้นโซมาติกเช่นไมโอบลาสต์และเซลล์ต้นกำเนิดที่ได้จากไขมัน (ADSCs) เป็นวัสดุในชีวิตประจำวัน อคตินั้นสามารถตัดสินใจได้ว่าโปรแกรมการแก้ไขจะเดินหน้าต่อไปหรือหยุดชะงัก
NHEJ, HDR และ HMEJ อคติในสายเซลล์ของสัตว์เลี้ยงลูกด้วยนม นก และปลา
หลังจากการตัดปัญหาหลักคือเส้นทางการซ่อมแซมใดที่ครอบงำในสายการผลิตเซลล์ ในสายโซมาติกของโคและสุกร การเชื่อมต่อที่ไม่ใช่โฮโมโลกัส (NHEJ) มักเป็นเส้นทางหลักการทำให้เกิดการเคาะออกแบบง่าย ๆ นั้นทำได้ง่ายกว่าการแทรกที่แม่นยำ โดยเฉพาะเมื่อเป้าหมายคือการรบกวนยีนเพื่อลดเวลาในการเพิ่มจำนวนหรือช่วยในการปรับตัวในสภาวะการแขวนลอย Ivy Farm Technologies แสดงให้เห็นโดยตรง: การเคาะออก CRISPR/Cas9 ของยีน NF2 ภายในในไมโอบลาสต์และ ADSCs ของสุกรและโคทำให้เวลาในการเพิ่มจำนวนลดลงและสนับสนุนการปรับตัวในสภาวะการแขวนลอย ซึ่งเป็นขั้นตอนสำคัญสำหรับ การขยายเนื้อที่เพาะเลี้ยง [1].
การซ่อมแซมด้วยการชี้นำโดยความเหมือนกัน (HDR) สามารถทำงานในสายเหล่านี้ได้ แต่ประสิทธิภาพมักจะต่ำเว้นแต่ระบบจะถูกปรับอย่างระมัดระวัง เมื่อคุณต้องการการแทรกที่แม่นยำ การเชื่อมต่อด้วยการชี้นำโดยความเหมือนกัน (HMEJ) หรือวิธีการอื่น ๆ ที่ใช้ไมโครโฮโมโลจีสามารถให้ค่าอัตราการรวมที่ดีกว่า ประเด็นหลักคือเรียบง่าย: ทดสอบพฤติกรรมการซ่อมแซมในประเภทเซลล์ที่ใช้ในการผลิตจริง การผ่านและการปรับตัวในสภาวะการแขวนลอยสามารถเปลี่ยนผลลัพธ์การแก้ไขได้เมื่อเวลาผ่านไป [1][4].
เซลล์ของนกสามารถแก้ไขได้ดี แต่ผลลัพธ์ของการซ่อมแซมมักจะแตกต่างกันมากจากการทดลองแต่ละครั้ง สายพันธุ์ปลาก็มักจะแก้ไขได้ดีเช่นกัน แต่การตรวจสอบที่คำนึงถึงการซ้ำซ้อนมีความสำคัญเพราะพาราล็อกสามารถซ่อนการแก้ไขที่แท้จริงได้ [3].
การออกแบบแม่แบบผู้บริจาคตามสายพันธุ์: รูปแบบและการจับคู่แอลลีล
สำหรับการแทรกยีน การออกแบบผู้บริจาคควรปฏิบัติตามเส้นทางการซ่อมแซม ไม่ใช่แค่จีโนมอ้างอิง จับคู่ผู้บริจาคกับแฮพลอไทป์ของผู้ก่อตั้งแทนที่จะเป็นอ้างอิงของสายพันธุ์ ในสายพันธุ์โคและสุกรที่มีลักษณะเฮเทอโรไซกัส ผู้บริจาคที่สร้างจากลำดับอ้างอิงเพียงอย่างเดียวอาจพลาดแอลลีลหนึ่ง [1].
ในปลา การออกแบบที่คำนึงถึงการซ้ำซ้อนเป็นสิ่งจำเป็นเพราะพาราล็อกสามารถทำให้การอ่านผลการแก้ไขซับซ้อนได้ ตรวจสอบทั้งไกด์และผู้บริจาคกับตำแหน่งที่แน่นอนที่คุณต้องการเปลี่ยนแทนที่จะสมมติว่าลำดับอ้างอิงหนึ่งบอกเรื่องราวทั้งหมด
การซ่อมแซมอคติและการออกแบบการเคาะเข้าโดยชนิด: ตารางเปรียบเทียบ
ตารางด้านล่างนี้เปลี่ยนความแตกต่างในการซ่อมแซมเหล่านั้นให้เป็นตัวเลือกการออกแบบระดับชนิดพันธุ์
| ชนิดพันธุ์ | แนวโน้มการซ่อมแซมที่โดดเด่น | ความท้าทายหลักสำหรับการแทรกที่แม่นยำ | ผู้บริจาคหรือกลยุทธ์การซ่อมแซมที่ต้องการ | คันโยกการเพิ่มประสิทธิภาพที่สำคัญ |
|---|---|---|---|---|
| โค | NHEJ | ประสิทธิภาพ HDR ต่ำในไมโอบลาสต์โซมาติกและ ADSCs | dsDNA หรือ ssODN; HMEJ สำหรับการแทรกที่แม่นยำ | การจับคู่ฮาโพลไทป์ของผู้ก่อตั้ง |
| สุกร | NHEJ | การจับคู่เฉพาะอัลลีล; อายุการใช้งานในหลอดทดลองจำกัด | ผู้บริจาคที่จับคู่เฉพาะอัลลีลหรือการน็อคเอาท์ ขึ้นอยู่กับเป้าหมายการแก้ไข | การออกแบบผู้บริจาคที่จับคู่เฉพาะอัลลีล |
| นก | ขึ้นอยู่กับกลไก | ผลลัพธ์การซ่อมแซมที่แปรปรวน | การส่งมอบ RNP สำหรับการซ่อมแซมที่ควบคุมได้ | การส่งมอบ RNP สำหรับการควบคุมเวลาให้แน่นขึ้น |
| ปลา | การแก้ไขที่มีประสิทธิภาพ เส้นทางแปรปรวน | การทำซ้ำทั้งจีโนม; การรบกวนพาราล็อก | การออกแบบไกด์และผู้บริจาคที่ตระหนักถึงการทำซ้ำ | ตรวจสอบสำเนาพาราล็อกทั้งสอง |
บทสรุป: กรอบการตัดสินใจสำหรับการแก้ไข CRISPR เฉพาะชนิดพันธุ์ในเนื้อสัตว์ที่เพาะเลี้ยง
กฎการตัดสินใจในทางปฏิบัตินั้นตรงไปตรงมา: จัดลำดับสายพันธุ์ผู้ก่อตั้ง ยืนยันโครงสร้างโลคัส ตรวจสอบความแปรปรวนของอัลลีล เลือกนิวเคลียสที่เข้ากันได้กับ PAM จากนั้นจับคู่กลยุทธ์การซ่อมแซมกับสายเซลล์.
เวิร์กโฟลว์นั้นทำงานในระดับสายพันธุ์ แต่ความแปรผันของสายผู้ก่อตั้งยังคงเปลี่ยนผลลัพธ์ กล่าวง่ายๆ คือ ค่ามาตรฐานระดับสายพันธุ์ไม่สามารถนำไปใช้กับสายผู้ก่อตั้งอื่นได้อย่างน่าเชื่อถือ การตรวจสอบความถูกต้องของสายผู้ก่อตั้งเป็นเกณฑ์ขั้นต่ำ [1].
มีอีกประเด็นหนึ่งที่ทีมไม่สามารถมองข้ามได้ การเพาะเลี้ยงอย่างต่อเนื่องสามารถทำให้เกิดการล่องลอยทางพันธุกรรมเมื่อเวลาผ่านไป ซึ่งหมายความว่าแผนการแก้ไขที่เคยใช้ได้ผลในช่วงแรกอาจไม่ทำงานในลักษณะเดียวกันในภายหลัง ด้วยเหตุนี้ ทีมควรสร้างการทดสอบทางพันธุกรรมและการทำงานเป็นประจำในเวิร์กโฟลว์ รวมถึงการจัดลำดับ RNA และการทำโปรไฟล์ epigenomic และกำหนดขีดจำกัดการผ่านก่อนที่การทำงานจะเริ่มล่องลอย [4].
ประเด็นสำคัญสำหรับทีม R&D, การผลิต และการจัดซื้อ
สำหรับทีมที่นำเวิร์กโฟลว์นี้ไปปฏิบัติ ลำดับความสำคัญค่อนข้างชัดเจน
- ทีมวิจัยและพัฒนา& ควรจัดลำดับก่อนและออกแบบจากแนวคิดของผู้ก่อตั้ง.
- ทีมการผลิต ควรจับคู่การออกแบบของผู้บริจาคให้ตรงกับอคติการซ่อมแซมของสายเซลล์.
คำถามที่พบบ่อย
ทำไมจีโนมอ้างอิงของสายพันธุ์ถึงไม่เพียงพอ?
จีโนมอ้างอิงของสายพันธุ์ไม่เพียงพอสำหรับการแก้ไขยีนของเนื้อสัตว์ที่เพาะเลี้ยง มันให้แผนที่ทั่วไปแก่คุณ แต่ไม่ใช่ชีววิทยาจริงของสายเซลล์ที่คุณกำลังทำงานด้วย.
ช่องว่างนั้นสำคัญ ในสายพันธุ์เกษตร องค์ประกอบการควบคุมที่สำคัญ เช่น โปรโมเตอร์, เอนแฮนเซอร์ และบริเวณที่ไม่แปลเป็นโปรตีนยังคงถูกอธิบายไม่ดีนัก ดังนั้นแม้ว่าจีโนมอ้างอิงจะดูสมบูรณ์บนกระดาษ แต่มันอาจไม่บอกคุณว่าตำแหน่งที่กำหนดทำงานอย่างไรในเซลล์ของคุณ.
มันยังละเว้นความแตกต่างเฉพาะสายเซลล์ที่ส่งผลโดยตรงต่อผลลัพธ์การแก้ไข รวมถึงโพลอยดี, รูปแบบอัลลีล และอคติของเส้นทางการซ่อมแซม.หากไม่มีข้อมูลนั้น นักวิจัยไม่สามารถคาดการณ์ผลลัพธ์การแก้ไขหรือปรับแต่งลักษณะต่างๆ เช่น การเจริญเติบโตของการระงับและการแพร่กระจายที่มีประสิทธิภาพได้อย่างน่าเชื่อถือ
ฉันจะรู้ได้อย่างไรว่าทุกอัลลีลได้รับการแก้ไขจริงหรือไม่?
เพื่อยืนยันว่าทุกอัลลีลได้รับการแก้ไขในสายเซลล์เนื้อสัตว์ที่เพาะเลี้ยงของคุณ ให้ทำการตรวจสอบทางพันธุกรรมเป็นระยะๆ การจัดลำดับจีโนมทั้งหมด ให้ภาพรวมของการเปลี่ยนแปลงลำดับในแต่ละตำแหน่ง ซึ่งช่วยให้คุณตรวจสอบว่าการแก้ไขเกิดขึ้นในที่ที่คุณคาดหวังหรือไม่ และมีสิ่งอื่นใดเปลี่ยนแปลงไปหรือไม่
การจัดลำดับเอ็กโซม สามารถช่วยกำหนดความเป็นซัยโกซิตี โดยแสดงว่าการแก้ไขเป็น โฮโมไซกัส หรือ เฮเทอโรไซกัส.
เมื่อใดที่ฉันควรเลือกการเคาะออกแทนการเคาะเข้า?
เลือก การเคาะออก เมื่อเป้าหมายหลักของคุณคือการปิดยีนและปรับปรุงลักษณะของเซลล์ ในเนื้อสัตว์ที่เพาะเลี้ยง ทีมงานมักใช้สิ่งนี้เพื่อสนับสนุนการเติบโตที่รวดเร็วขึ้น การทำให้เป็นอมตะ หรือความต้องการปัจจัยนำเข้าที่ต่ำลงโดยการเปลี่ยนแปลงเมแทบอลิซึมของเซลล์
เลือก knock-in เมื่อคุณต้องการเพิ่มข้อมูลทางพันธุกรรมใหม่หรือเพิ่มการแสดงออกของโปรตีนที่มีประโยชน์ กล่าวโดยง่าย การเลือกขึ้นอยู่กับสิ่งนี้: คุณกำลังลบอุปสรรคหรือเพิ่มฟังก์ชันใหม่?


