

Nếu tôi thiết kế từ tham chiếu loài thay vì dòng sáng lập, tôi có thể bỏ lỡ mục tiêu trước khi tôi thậm chí đặt hàng hướng dẫn.
Đối với các kỹ sư quy trình sinh học, nhà khoa học nuôi cấy tế bào và các đội R&D thịt nuôi cấy, điểm cốt lõi rất đơn giản: thành công chỉnh sửa phụ thuộc vào dòng tế bào chính xác trước mặt tôi, không phải tên loài trên nhãn. Trong bài viết này, tôi thu hẹp con đường quyết định xuống sáu kiểm tra: chất lượng lắp ráp bộ gen, đa bội, biến thể alen, truy cập PAM, thiên vị sửa chữa và thiết kế nhà tài trợ. Điều đó quan trọng cho cả hai lớp chỉnh sửa: knockouts có thể chịu được nhiều biến đổi sửa chữa hơn, trong khi knock-ins phụ thuộc nhiều hơn vào trình tự locus và sự phù hợp của nhà tài trợ.
Một vài điểm thực tế nổi bật ngay lập tức:
- Giải trình tự dòng sáng lập trước tiên, sau đó thiết kế hướng dẫn từ trình tự đó.
- Đếm tất cả các alen tại locus trước khi gọi một knockout hoàn thành.
- Kiểm tra truy cập PAM trên từng alen, không chỉ trên bộ gen tham chiếu.
- Dự kiến sự khác biệt giữa các loài trong sửa chữa, với NHEJ thường chiếm ưu thế trong các dòng tế bào soma bò và lợn.
- Khớp mẫu hiến với haplotype sáng lập cho knock-ins.
- Giải trình tự lại các dòng đã truyền qua nếu sự trôi dạt có thể ảnh hưởng đến liên kết hướng dẫn hoặc kết quả chỉnh sửa.
Một kết quả trong bài báo cho thấy sự liên quan ngay lập tức của quá trình này: Knockout NF2 được báo cáo làm giảm thời gian nhân đôi từ 5%–100% trong tế bào cơ và ADSC của lợn và bò, đồng thời hỗ trợ thích nghi treo lơ lửng. Nhưng loại kết quả đó không có nghĩa là một kế hoạch CRISPR có thể áp dụng cho bò, lợn, chim và cá mà không cần làm lại.
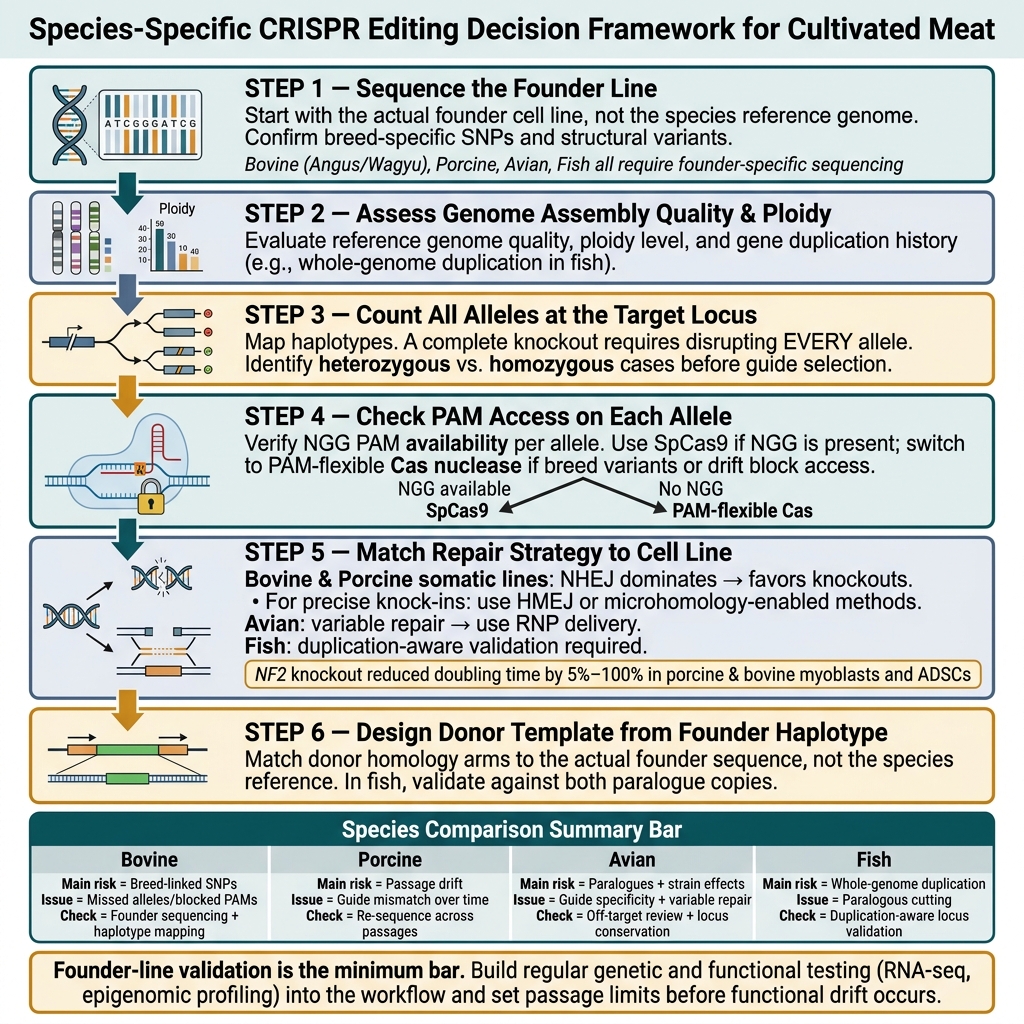
Quy trình Chỉnh sửa CRISPR Đặc thù Loài cho Thịt Nuôi Cấy
So sánh nhanh
| Loài | Rủi ro thiết kế chính | Vấn đề chỉnh sửa chính | Điều tôi sẽ kiểm tra đầu tiên |
|---|---|---|---|
| Bò | SNPs liên kết giống và biến thể cấu trúc | Alleles bị bỏ sót và PAMs bị chặn | Giải trình tự dòng sáng lập và lập bản đồ haplotype |
| Lợn | Trôi dạt qua các lần truyền | Hướng dẫn không khớp theo thời gian | Giải trình tự lại qua các lần truyền |
| Gia cầm | Paralogues và hiệu ứng dòng | Đặc thù hướng dẫn và sửa chữa biến đổi | Bảo tồn locus và xem xét ngoài mục tiêu |
| Cá | Nhân đôi toàn bộ bộ gen | Cắt paralogous và kết quả khó đọc | Xác nhận locus có nhận thức nhân đôi |
Vì vậy, nếu tôi muốn một kế hoạch chỉnh sửa sạch cho các tế bào thịt nuôi cấy, tôi bắt đầu với bộ gen sáng lập, xác minh cấu trúc allele, chọn một nuclease có thể tiếp cận vị trí, và chỉ sau đó quyết định liệu dòng tế bào phù hợp hơn với một knockout hay một chèn chính xác.
sbb-itb-ffee270
Genomes tham chiếu, đa bội và nhân đôi gen đặt ra các ràng buộc ban đầu
Bắt đầu với trình tự dòng sáng lập, không phải tham chiếu loài. Nghe có vẻ là một sự khác biệt nhỏ, nhưng trong thực tế nó thay đổi toàn bộ kế hoạch chỉnh sửa.
Số lượng alen và biến thể trình tự địa phương cho bạn biết liệu một knockout có thể chỉnh sửa được ngay từ đầu hay không. Đếm các alen trước khi bạn chọn hướng dẫn: một knockout chức năng có nghĩa là phá vỡ mọi alen tại locus mục tiêu, vì vậy bạn cần tách biệt các trường hợp dị hợp tử khỏi đồng hợp tử trước khi chọn hướng dẫn [1]. Bước đó thu nhỏ không gian tìm kiếm hướng dẫn trước khi bạn thậm chí đến khả dụng PAM.
Genomes bò và lợn: dị hợp tử, pangenomes và biến thể cấu trúc liên kết giống
Ở bò, biến thể liên kết giống là một ràng buộc nghiêm trọng. Các dòng Angus và Wagyu có thể mang các mẫu SNP và biến thể cấu trúc khác nhau, vì vậy một bộ gen tham chiếu của một loài có thể bỏ sót chuỗi thực sự có mặt trong nhóm sáng lập. Công nghệ Ivy Farm đã giải quyết điều này bằng cách giải trình tự dòng sáng lập và xác nhận chỉnh sửa trong các nhóm Angus và Wagyu [1].
Đối với các dòng lợn, lộ trình an toàn nhất là giải trình tự dòng sáng lập trực tiếp, sau đó giải trình tự lại qua các lần chuyển. Sự biến đổi và trôi dạt đặc trưng của dòng trong nuôi cấy đều có thể làm gián đoạn thiết kế hướng dẫn và làm cho việc xác minh chỉnh sửa sau này trở nên phức tạp [1] [4].
Khi chuỗi người sáng lập được xác nhận, kiểm tra tiếp theo rất đơn giản: trang đích có PAM có thể sử dụng không?
Genomes của chim và cá: paralogues, quét chọn lọc và nhân đôi toàn bộ genome
Trong các loài chim, quét chọn lọc liên kết với chủng có thể loại bỏ sự đa dạng chuỗi tại các locus mục tiêu. Thêm vào đó, các bản sao paralogue được thừa hưởng từ các sự kiện nhân đôi cũ hơn có nghĩa là tính đặc hiệu của hướng dẫn phải được kiểm tra trước khi thiết kế tiếp tục.
Cá thêm một lớp khác. Nhân đôi toàn bộ genome đã để lại các bản sao gene nhân đôi được giữ lại trên nhiều genome, vì vậy một hướng dẫn nhắm vào một bản sao có thể cũng cắt các locus khác trừ khi sàng lọc ngoài mục tiêu tính đến lịch sử nhân đôi đó.
Khi nào cần tái giải trình tự dòng tế bào người sáng lập trước khi thiết kế hướng dẫn
Tái giải trình tự là cần thiết khi vật liệu ban đầu không đồng nhất hoặc khi dòng đã trải qua thời gian trong nuôi cấy liên tục.Giải trình tự toàn bộ hệ gen hoặc exome cung cấp cái nhìn rõ ràng nhất, và các cánh tay tương đồng của người hiến cần phải khớp với trình tự sáng lập thực tế trước khi bất kỳ chương trình knock-in nào [2] [4].
| Loài | Thách thức bộ gen chính | Hành động giải trình tự được khuyến nghị |
|---|---|---|
| Bò (Angus/Wagyu) | SNPs và biến thể cấu trúc đặc trưng giống | Giải trình tự mục tiêu hoặc WGS của dòng sáng lập để xác nhận sự phù hợp của gRNA [1] |
| Tế bào cơ heo | Mật độ SNP cao và trôi dạt nhân đôi nhanh chóng | Giải trình tự lại qua các lần chuyển với NGS [1] [4] |
| Cá / loài biển | Nhân đôi toàn bộ bộ gen và giữ lại các bản sao trùng lặp | Lắp ráp de novo hoặc giải trình tự sâu của dòng sáng lập [2] |
Sau khi trình tự sáng lập được khóa lại, sự biến đổi alen và khả năng có sẵn của PAM quyết định những gì có thể nhắm mục tiêu.Nói một cách đơn giản, sự không khớp đặc hiệu allele và tần suất PAM xác định những locus nào có thể bị cắt.
Biến thể allele và sự sẵn có của PAM xác định những chỉnh sửa nào có thể nhắm mục tiêu thực tế
Một khi trình tự sáng lập được cố định, câu hỏi tiếp theo rất đơn giản: liệu mọi allele vẫn có thể được chỉnh sửa tại vị trí đó, và có PAM nào có thể sử dụng không? Trong thực tế, thiết kế hướng dẫn phụ thuộc vào hai kiểm tra: bảo tồn haplotype và truy cập PAM.
Tránh cắt đặc hiệu allele ở gia súc, lợn, gà và cá
Một đa hình ở bất kỳ đâu trong protospacer 20 nucleotide, hoặc ngay tại PAM, có thể ngăn một allele bị cắt. Điều đó có thể để lại cho bạn một nhóm tế bào hỗn hợp nơi việc cắt một phần trông giống như hiệu quả chỉnh sửa kém, khi vấn đề thực sự là sự rơi rụng allele trong quá trình cắt.
Giải pháp rất đơn giản. Sắp xếp locus mục tiêu trong dòng sáng lập, lập bản đồ haplotype, và chỉ khóa các hướng dẫn trong các vùng được bảo tồn hoàn toàn trên tất cả các allele đã xác định. Sau đó kiểm tra lại locus sau khi truyền qua nhiều lần.
Nếu vị trí không được bảo tồn trên các haplotype, lựa chọn PAM không quan trọng.
Khi SpCas9 là đủ và khi cần các nuclease linh hoạt PAM
Nếu có mặt PAM NGG, SpCas9 là lựa chọn mặc định. Nếu không có, bạn có thể thiết kế lại mục tiêu hoặc chuyển sang một Cas nuclease linh hoạt PAM. Quyết định đó nên dựa trên trình tự sáng lập, không phải trên bộ gen tham chiếu.
So sánh loài: khả năng nhắm mục tiêu và sự phù hợp của nuclease trong nháy mắt
| Loài | Các loại tế bào phổ biến để chỉnh sửa | Hạn chế khả năng nhắm mục tiêu | Sự phù hợp tốt nhất của nuclease |
|---|---|---|---|
| Bò | Myoblasts, ADSCs, iPSCs | SNPs liên kết giống (e.g. , Angus vs.Wagyu) [1] | SpCas9 khi NGG có sẵn; Cas linh hoạt PAM khi các biến thể giống ngăn chặn truy cập |
| Porcine | Nguyên bào cơ, Nguyên bào sợi | Trôi dạt văn hóa nhanh chóng qua các lần chuyển [1] | SpCas9; chuyển sang Cas linh hoạt PAM nếu trôi dạt thay đổi vị trí PAM |
| Avian | Tế bào vệ tinh, Tế bào gốc phôi | Trôi dạt di truyền trong văn hóa liên tục [4] | Cas linh hoạt PAM được ưa chuộng khi sự chồng lấn paralogue giới hạn tính đặc hiệu của SpCas9 |
| Fish | Nguyên bào cơ (Cá hồi, Cá chép, Cá thu) | Nhân đôi toàn bộ bộ gen và paralogue [3] | Cas linh hoạt PAM để điều hướng các locus nhân đôi |
Một khi một vị trí có thể nhắm mục tiêu, xu hướng sửa chữa xác định liệu chỉnh sửa trở thành knockout hay knock-in.
Thiên vị đường sửa chữa và thiết kế nhà tài trợ điều khiển kết quả knockout và knock-in
Một hướng dẫn có thể cắt gọn gàng nhưng vẫn không đạt mục tiêu nếu tế bào sửa chữa vết cắt theo cách sai. Thiên vị sửa chữa đó thường quyết định liệu bạn có kết thúc với một knockout, một hồ sơ indel hỗn hợp, hay một knock-in chính xác. Trong công việc thịt nuôi cấy, nơi các dòng soma như myoblasts và tế bào gốc từ mô mỡ (ADSCs) là vật liệu hàng ngày, thiên vị đó có thể quyết định liệu một chương trình chỉnh sửa có tiến triển hay bị đình trệ.
NHEJ, HDR và HMEJ thiên vị trên các dòng tế bào động vật có vú, chim và cá
Sau khi cắt, vấn đề chính là con đường sửa chữa nào chiếm ưu thế trong dòng tế bào sản xuất. Trong các dòng soma bò và lợn, Non-Homologous End Joining (NHEJ) thường là con đường chính.Điều này làm cho việc loại bỏ đơn giản trở nên khả thi hơn so với việc chèn chính xác, đặc biệt khi mục tiêu là làm gián đoạn một gen để giảm thời gian nhân đôi hoặc hỗ trợ thích nghi trong môi trường treo. Ivy Farm Technologies đã chứng minh điều này trực tiếp: CRISPR/Cas9 loại bỏ gen nội sinh NF2 trong tế bào cơ và ADSCs của lợn và bò đã giảm thời gian nhân đôi và hỗ trợ thích nghi trong môi trường treo, một bước quan trọng cho quy mô sản xuất thịt nuôi cấy [1].
Sửa chữa Hướng dẫn Đồng dạng (HDR) có thể hoạt động trong các dòng này, nhưng hiệu quả thường thấp trừ khi hệ thống được điều chỉnh cẩn thận. Khi bạn cần một chèn chính xác, Kết nối Kết thúc Trung gian Đồng dạng (HMEJ) hoặc các phương pháp hỗ trợ vi đồng dạng khác có thể cung cấp tỷ lệ tích hợp tốt hơn. Điểm chính rất đơn giản: kiểm tra hành vi sửa chữa trong loại tế bào sản xuất thực tế. Quá trình chuyển tiếp và thích nghi trong môi trường treo có thể thay đổi kết quả chỉnh sửa theo thời gian [1][4].
Các tế bào chim có thể chỉnh sửa tốt, nhưng kết quả sửa chữa có xu hướng thay đổi nhiều hơn từ lần chạy này sang lần chạy khác. Các dòng cá cũng thường chỉnh sửa tốt, nhưng việc xác nhận nhận thức về sự trùng lặp là quan trọng vì các paralogues có thể che giấu chỉnh sửa thực sự [3].
Thiết kế mẫu hiến tặng theo loài: định dạng và khớp alen
Đối với knock-ins, thiết kế mẫu hiến tặng nên theo con đường sửa chữa, không chỉ là bộ gen tham chiếu. Khớp mẫu hiến tặng với haplotype sáng lập thay vì tham chiếu loài. Trong các dòng bò và lợn dị hợp tử, một mẫu hiến tặng chỉ được xây dựng từ chuỗi tham chiếu có thể bỏ lỡ một alen [1].
Ở cá, thiết kế nhận thức về sự trùng lặp là điều cần thiết vì các paralogues có thể làm phức tạp việc đọc chỉnh sửa. Kiểm tra cả hướng dẫn và mẫu hiến tặng đối với vị trí chính xác mà bạn muốn thay đổi thay vì giả định rằng một chuỗi tham chiếu kể toàn bộ câu chuyện.
Bảng so sánh thiết kế sửa chữa thiên vị và knock-in theo loài
Bảng dưới đây chuyển những khác biệt sửa chữa đó thành lựa chọn thiết kế theo cấp độ loài.
| Loài | Khuynh hướng sửa chữa chiếm ưu thế | Thách thức chính cho việc chèn chính xác | Chiến lược nhà tài trợ hoặc sửa chữa ưa thích | Đòn bẩy tối ưu hóa chính |
|---|---|---|---|---|
| Bò | NHEJ | Hiệu quả HDR thấp trong tế bào cơ myoblast và ADSC soma | dsDNA hoặc ssODN; HMEJ cho chèn chính xác | Phù hợp haplotype người sáng lập |
| Lợn | NHEJ | Phù hợp allele cụ thể; tuổi thọ in vitro hạn chế | Nhà tài trợ phù hợp allele hoặc knockout, tùy thuộc vào mục tiêu chỉnh sửa | Thiết kế nhà tài trợ phù hợp allele |
| Chim | Phụ thuộc vào cơ chế | Kết quả sửa chữa biến đổi | Giao hàng RNP để sửa chữa có kiểm soát | Giao hàng RNP để kiểm soát thời gian chặt chẽ hơn |
| Cá | Chỉnh sửa hiệu quả, con đường biến đổi | Nhân đôi toàn bộ bộ gen; can thiệp paralogue | Thiết kế hướng dẫn và nhà tài trợ nhận thức nhân đôi | Xác nhận cả hai bản sao paralogue |
Kết luận: một khung quyết định cho chỉnh sửa CRISPR theo loài trong thịt nuôi cấy
Quy tắc quyết định thực tế rất đơn giản: giải trình tự dòng người sáng lập, xác nhận cấu trúc locus, kiểm tra biến thể allele, chọn nuclease tương thích PAM, sau đó khớp chiến lược sửa chữa với dòng tế bào.
Quy trình làm việc đó hoạt động ở cấp độ loài, nhưng sự biến đổi dòng sáng lập vẫn làm thay đổi kết quả. Nói một cách đơn giản, các mặc định ở cấp độ loài không thể chuyển giao một cách đáng tin cậy từ dòng sáng lập này sang dòng sáng lập khác. Việc xác nhận dòng sáng lập là tiêu chuẩn tối thiểu [1].
Có một điểm khác mà các nhóm không thể xem nhẹ. Văn hóa liên tục có thể giới thiệu sự trôi dạt di truyền theo thời gian, điều đó có nghĩa là kế hoạch chỉnh sửa đã hoạt động ở một đoạn trước đó có thể không hoạt động theo cùng một cách sau này. Vì lý do đó, các nhóm nên xây dựng các thử nghiệm di truyền và chức năng thường xuyên vào quy trình làm việc, bao gồm giải trình tự RNA và lập hồ sơ epigenomic, và đặt giới hạn đoạn trước khi chức năng bắt đầu trôi dạt [4].
Những điểm cần lưu ý chính cho các nhóm R&D, sản xuất và mua sắm
Đối với các nhóm thực hiện quy trình làm việc này, các ưu tiên khá rõ ràng.
- Các nhóm R&D nên sắp xếp sớm và thiết kế từ dòng sáng lập.
- Các nhóm sản xuất nên khớp thiết kế của nhà tài trợ với xu hướng sửa chữa của dòng tế bào.
Câu hỏi thường gặp
Tại sao bộ gen tham chiếu của loài không đủ?
Một bộ gen tham chiếu của loài không đủ cho chỉnh sửa gen thịt nuôi cấy. Nó cung cấp cho bạn một bản đồ tổng quát, nhưng không phải là sinh học thực tế của dòng tế bào mà bạn đang làm việc.
Khoảng cách đó quan trọng. Trong các loài nông nghiệp, các yếu tố điều hòa chính như promoter, enhancer và các vùng không dịch mã vẫn thường chưa được đặc trưng rõ ràng. Vì vậy, ngay cả khi một bộ gen tham chiếu trông hoàn chỉnh trên giấy, nó có thể không cho bạn biết cách một locus cụ thể hoạt động trong các tế bào của bạn.
Nó cũng bỏ qua các khác biệt đặc thù của dòng tế bào ảnh hưởng trực tiếp đến kết quả chỉnh sửa, bao gồm đa bội, mẫu hình allele và xu hướng đường dẫn sửa chữa.Nếu không có thông tin đó, các nhà nghiên cứu không thể dự đoán kết quả chỉnh sửa một cách đáng tin cậy hoặc điều chỉnh các đặc điểm như tăng trưởng treo và sự phát triển hiệu quả.
Làm thế nào để tôi biết liệu mọi alen đã thực sự được chỉnh sửa?
Để xác nhận rằng mọi alen đã được chỉnh sửa trong các dòng tế bào thịt nuôi cấy của bạn, hãy thực hiện giám sát di truyền định kỳ. Giải trình tự toàn bộ bộ gen cung cấp cho bạn cái nhìn tổng quan về các thay đổi trình tự trên mỗi locus, giúp bạn kiểm tra xem việc chỉnh sửa có xảy ra ở nơi bạn mong đợi và liệu có điều gì khác thay đổi trong quá trình này không.
Giải trình tự exome sau đó có thể giúp xác định tính đồng hợp tử, cho thấy liệu chỉnh sửa là đồng hợp tử hay dị hợp tử.
Khi nào tôi nên chọn knockout thay vì knock-in?
Chọn knockout khi mục tiêu chính của bạn là tắt một gen và cải thiện một đặc điểm tế bào.Trong thịt nuôi cấy, các nhóm thường sử dụng điều này để hỗ trợ tăng trưởng nhanh hơn, bất tử hóa, hoặc giảm nhu cầu đầu vào bằng cách thay đổi quá trình trao đổi chất của tế bào.
Chọn một knock-in khi bạn cần thêm thông tin di truyền mới hoặc tăng cường biểu hiện của một protein hữu ích. Nói một cách đơn giản, sự lựa chọn phụ thuộc vào điều này: bạn đang loại bỏ một rào cản, hay thêm một chức năng mới?


