

種の参照からではなく創設系統から設計する場合、ガイドを注文する前にターゲットを逃す可能性があります。
バイオプロセスエンジニア、細胞培養科学者、培養肉のR&Dチームにとって、核心はシンプルです:編集の成功は、目の前の正確な細胞系 に依存しており、ラベルに記載された種名ではありません。. この記事では、意思決定の道筋を6つのチェックに絞ります:ゲノムアセンブリの品質、倍数性、アレル変異、PAMアクセス、修復バイアス、ドナー設計. これは両方の編集クラスにとって重要です:ノックアウトはより多くの修復の変動を許容できますが、ノックインは座位配列とドナーの一致に大きく依存します。
いくつかの実用的なポイントがすぐに浮かび上がります:
- まず創設系統をシーケンスし, そのシーケンスからガイドを設計します。
- ノックアウトを完了と見なす前に、座位のすべてのアレルをカウントします。
- 各アリルでのPAMアクセスを確認, 参照ゲノムだけでなく。
- 修復における種の違いを予期する, 牛および豚の体細胞系ではNHEJがしばしば優勢である。
- ノックインのためにドナーテンプレートを創始者ハプロタイプに一致させる。
- ガイド結合や編集の読み出しに影響を与える可能性がある場合は、継代された系統を再シーケンスする。
記事の一つの結果はこの即時プロセスの関連性を示している:NF2ノックアウトは、豚および牛の筋芽細胞とADSCsにおいて倍加時間を5%–100%短縮し、懸濁適応をサポートすることが報告された. しかし、そのような結果は一つのCRISPR 計画が牛、豚、鳥、魚に再作業なしで適用されることを意味するわけではない。
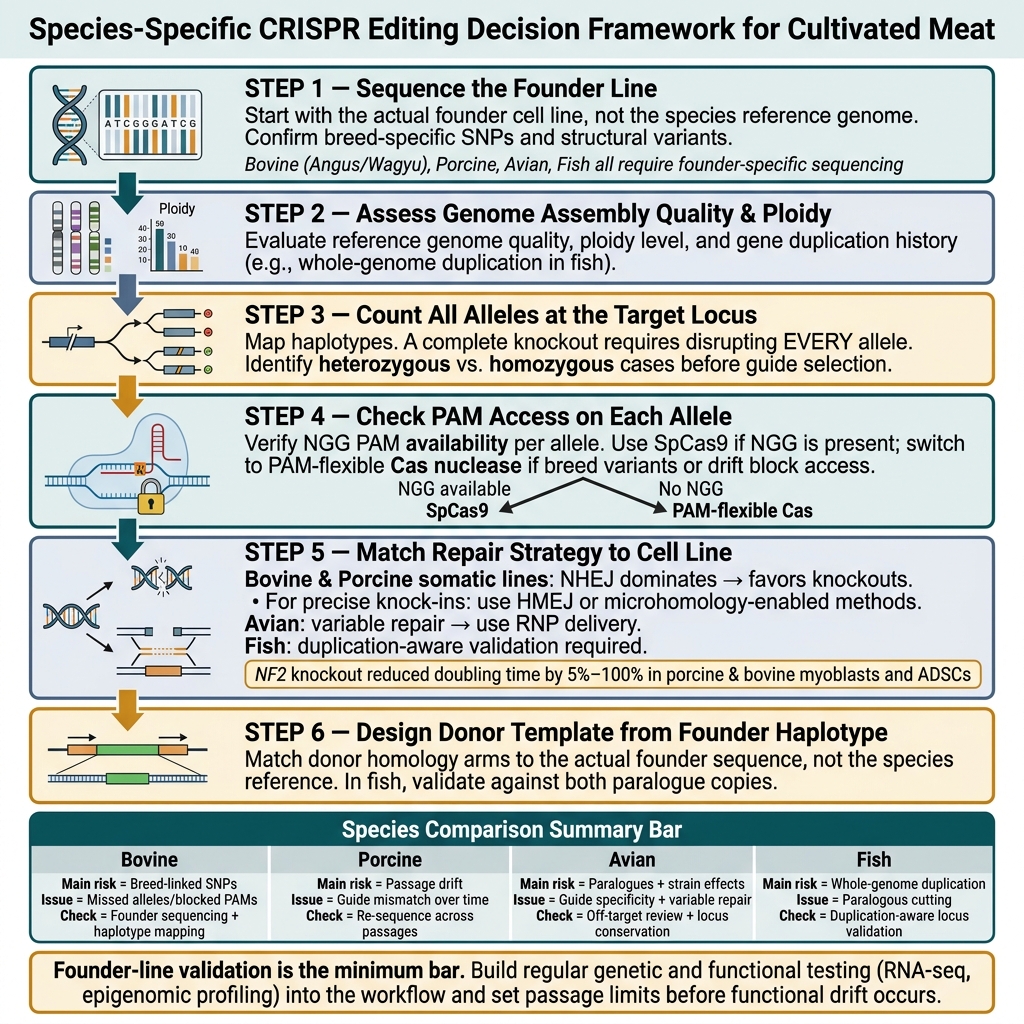
培養肉のための種特異的CRISPR編集ワークフロー
クイック比較
| 種 | 主な設計リスク | 主な編集問題 | 最初に確認すること |
|---|---|---|---|
| ウシ | 品種に関連するSNPと構造変異 | 見逃されたアレルとブロックされたPAM | 創始系統のシーケンシングとハプロタイプマッピング |
| ブタ | 継代間のドリフト | 時間経過によるガイドミスマッチ | 継代間の再シーケンシング |
| 鳥類 | パラログと系統効果 | ガイド特異性と可変修復 | 遺伝子座の保存とオフターゲットレビュー |
| 魚類 | 全ゲノム重複 | パラログ切断と読みにくい結果 | 重複を考慮した遺伝子座の検証 |
したがって、培養肉細胞のためのクリーンな編集計画を立てるには、まず創始ゲノムから始め、アレル構造を確認し、部位に到達できるヌクレアーゼを選択し、その後でノックアウトが適しているか、正確な挿入が適しているかを決定します。
sbb-itb-ffee270
リファレンスゲノム、倍数性、遺伝子重複が開始制約を設定する
創始系統の配列, から始めます。これは小さな違いのように聞こえますが、実際には編集計画全体を変えます。
アレル数と局所的な配列変異は、ノックアウトがそもそも編集可能かどうかを教えてくれます。ガイドを選ぶ前にアレルを数えます:機能的ノックアウトはターゲット遺伝子座のすべてのアレルを破壊することを意味します, したがって、ガイド選択の前にヘテロ接合とホモ接合のケースを分ける必要があります[1]. そのステップは、PAMの利用可能性に到達する前にガイド検索空間を縮小します。
ウシとブタのゲノム:ヘテロ接合性、パンゲノム、品種関連の構造変異
ウシでは、品種関連の変異が重大な制約です。アンガスと和牛の系統は異なるSNPパターンや構造変異を持つことがあり、1つの種のリファレンスゲノムでは創始プールに実際に存在する配列を見逃す可能性があります。アイビーファームテクノロジーズ は、創始系統をシーケンスし、アンガスと和牛のプールで編集を確認することでこれに対処しました[1] .
豚の系統, にとって最も安全な方法は、創始系統を直接シーケンスし、その後パッセージを通じて再シーケンスすることです。系統特異的な変異と培養中のドリフトは、ガイド設計を妨げ、後の編集確認を複雑にする可能性があります[1] [4] .
創設者シーケンスが確認されたら、次のチェックは簡単です:ターゲットサイトに使用可能なPAMがありますか?
鳥類と魚類のゲノム:パラログ、選択スイープ、全ゲノム重複
鳥類では、系統に関連した選択スイープがターゲット遺伝子座の配列多様性を除去することがあります。さらに、古い重複イベントから継承されたパラログコピーにより、設計を進める前にガイドの特異性を確認する必要があります。
魚類はさらに別の層を追加します。全ゲノム重複により、多くのゲノムに重複した遺伝子コピーが残されているため、1つのコピーを対象としたガイドが他の遺伝子座も切断する可能性があり、その重複履歴を考慮したオフターゲットスクリーニングが必要です。
ガイド設計前に創設細胞株を再シーケンスするタイミング
再シーケンスは、出発材料が不均一である場合や、ラインが継続的な培養に時間を費やした場合に必要です。全ゲノムまたはエクソームシーケンシングは最も明確な視点を提供し、ドナー相同性アームはノックインプログラムの前に実際の創始者シーケンスと一致する必要があります[2] [4] .
| 種 | 主なゲノムの課題 | 推奨されるシーケンシングのアクション |
|---|---|---|
| ウシ(アンガス/和牛) | 品種特異的なSNPと構造変異 | 創始系統のgRNA一致を確認するためのターゲットシーケンシングまたはWGS[1] |
| ブタ筋芽細胞 | 高いSNP密度と急速な倍加ドリフト | NGSを用いた継代間の再シーケンス[1] [4] |
| 魚類/海洋種 | 全ゲノム重複と保持された重複コピー | 創始系統のデノボアセンブリまたは深い再シーケンシング[2] |
創始シーケンスが確定した後、アレル変異とPAMの可用性がターゲット可能なものを決定します。簡単に言えば、アリル特異的ミスマッチとPAMの頻度が、どの遺伝子座が切断可能かを決定します。
アリルの変異とPAMの利用可能性が、どの編集が現実的にターゲット可能かを決定します。
創始配列が固定されたら、次の質問は簡単です:その部位で全てのアリルがまだ編集可能で、使用可能なPAMがあるかどうか?実際には、ガイド設計はハプロタイプの保存とPAMのアクセスの2つのチェックに帰着します。
牛、豚、鶏、魚におけるアリル特異的切断の回避
20ヌクレオチドのプロトスペーサーのどこか、またはPAMのすぐそばに多型があると、1つのアリルが切断されないことがあります。それにより、部分的な切断が編集効率の低さのように見える混合細胞プールが残ることがありますが、実際の問題は切断中のアリルドロップアウトです。
解決策は簡単です。 創始系統におけるターゲット遺伝子座を配列決定し、ハプロタイプをマッピングし、同定されたすべてのアレルにわたって完全に保存されている領域でのみガイドをロックします。その後、延長継代後に遺伝子座を再確認します。
ハプロタイプ間で部位が保存されていない場合、PAMの選択は重要ではありません。
SpCas9が十分である場合と、PAM柔軟性のあるヌクレアーゼが必要な場合
NGG PAMが存在する場合、 SpCas9がデフォルトの選択です。存在しない場合は、ターゲットを再設計するか、PAM柔軟性のあるCasヌクレアーゼに移行します。その決定は、リファレンスゲノムではなく、創始配列から行うべきです。
種比較: ターゲット可能性とヌクレアーゼ適合性の概要
| 種 | 編集に一般的な細胞タイプ | ターゲット可能性の制約 | 最適なヌクレアーゼ適合性 |
|---|---|---|---|
| ウシ | 筋芽細胞、ADSCs、iPSCs | 品種関連SNPs (e.g. , アンガス vs.和牛)[1] | NGGが利用可能な場合のSpCas9; 品種変異がアクセスを妨げる場合のPAM柔軟性Cas |
| 豚 | 筋芽細胞、線維芽細胞 | 継代を重ねるごとの迅速な培養ドリフト[1] | SpCas9; ドリフトがPAMサイトを変化させた場合はPAM柔軟性Casに切り替え |
| 鳥類 | 衛星細胞、胚性幹細胞 | 連続培養における遺伝的ドリフト[4] | SpCas9の特異性を制限するパラログ重複がある場合はPAM柔軟性Casが推奨 |
| 魚類 | 筋芽細胞(マス、コイ、サバ) | 全ゲノム重複とパラログ[3] | 重複した遺伝子座をナビゲートするためのPAM柔軟性Cas |
一度サイトがターゲット可能になると、修復バイアスがノックアウトまたはノックインになるかを決定します。
修復経路のバイアスとドナー設計がノックアウトおよびノックインの結果を左右する
ガイドがきれいに切断しても、細胞が誤った方法で修復すると目標を逃すことがあります。その修復バイアスは、ノックアウト、混合インデルプロファイル、または正確なノックインのいずれかになるかを決定することがよくあります。筋芽細胞や脂肪由来幹細胞(ADSC)などの体細胞系が日常的に使用される培養肉の作業では、そのバイアスが編集プログラムが進むか停滞するかを決定することがあります。
NHEJ, HDR および HMEJ のバイアスは哺乳類、鳥類、魚類の細胞系にわたる
切断後の主な問題は、生産細胞系でどの修復経路が優勢になるかです。ウシおよびブタの体細胞系では、非相同末端結合(NHEJ)が通常主要な経路です。それにより、特に倍加時間を短縮したり、懸濁適応を助けるために遺伝子を破壊することを目的とする場合、正確な挿入よりも単純なノックアウトがより達成しやすくなります。Ivy Farm Technologiesはこれを直接示しました:ブタおよびウシの筋芽細胞とADSCsにおける内因性 NF2遺伝子のCRISPR/Cas9ノックアウトは、倍加時間を短縮し、懸濁適応をサポートしました。これは培養肉のスケーリングにとって重要なステップです [1] .
相同組換え修復(HDR)はこれらの系統で機能しますが、システムが慎重に調整されない限り、効率はしばしば低いです。正確な挿入が必要な場合、相同媒介末端結合(HMEJ)や他のマイクロホモロジーを利用した方法がより良い統合率を提供することがあります。主なポイントは単純です:実際の生産細胞タイプで修復挙動をテストすることです。継代培養と懸濁適応は、時間の経過とともに編集結果を変化させる可能性があります[1][4].
鳥類の細胞は編集がうまくいくことが多いですが、修復の結果は実行ごとに変動する傾向があります。魚類の系統も編集がうまくいくことが多いですが、重複を考慮した検証が重要です。なぜなら、パラログが真の編集を隠す可能性があるからです[3].
種別によるドナーのテンプレート設計:フォーマットとアリルの一致
ノックインの場合、ドナー設計は修復経路に従うべきであり、参照ゲノムだけに依存してはいけません。ドナーは種の参照ではなく、創始者のハプロタイプに一致させるべきです。ヘテロ接合のウシやブタの系統では、参照配列のみから構築されたドナーは一方のアリルを見逃す可能性があります[1].
魚類では、重複を考慮した設計が必須です。なぜなら、パラログが編集の読み取りを複雑にする可能性があるからです。1つの参照配列が全体を示していると仮定するのではなく、変更したい正確な遺伝子座に対してガイドとドナーの両方を確認してください。
種別による修復バイアスとノックイン設計:比較表
以下の表は、これらの修復の違いを種別レベルの設計選択に変換します。
| 種 | 優勢な修復傾向 | 正確な挿入の主な課題 | 好ましいドナーまたは修復戦略 | 主要な最適化レバー |
|---|---|---|---|---|
| ウシ | NHEJ | 体細胞筋芽細胞およびADSCsにおけるHDR効率の低さ | dsDNAまたはssODN; 正確な挿入のためのHMEJ | 創始者ハプロタイプの一致 |
| ブタ | NHEJ | アレル固有の一致; in vitro寿命の制限 | 編集目標に応じたアレル一致ドナーまたはノックアウト | アレル一致ドナーデザイン |
| 鳥類 | メカニズム依存 | 修復結果の変動 | 制御された修復のためのRNPデリバリー | より厳密なタイミング制御のためのRNPデリバリー |
| 魚類 | 効率的な編集、経路の変動 | 全ゲノム重複; パラログ干渉 | 重複を考慮したガイドとドナーデザイン | 両方のパラログコピーを検証 |
結論: 栽培肉における種特異的CRISPR編集のための意思決定フレームワーク
実用的な意思決定ルールは簡単です: 創始者系統をシーケンスし、遺伝子座構造を確認し、アレル変異をチェックし、PAM互換ヌクレアーゼを選び、修復戦略を細胞系に合わせる.
そのワークフローは種レベルで機能しますが、創始者系統の変動が結果を変えることがあります。簡単に言えば、種レベルのデフォルトは、ある創始者系統から別の系統に確実に引き継がれるわけではありません。創始者系統の検証は最低限の基準です [1] .
チームが軽視できないもう一つのポイントがあります。継続的な培養は時間とともに遺伝的漂移を引き起こす可能性があり、以前のパッセージで機能した編集計画が後で同じように機能しない可能性があります。そのため、チームはRNAシーケンシングやエピゲノムプロファイリングを含む定期的な遺伝的および機能的テストをワークフローに組み込み、機能が漂移し始める前にパッセージ制限を設定する必要があります[4].
R&D、製造、調達チームのための重要なポイント
このワークフローを実践するチームにとって、優先事項は非常に明確です。
- R&Dチームは、早期にシーケンスを行い、創業者ラインから設計する必要があります。
- 生産チームは、ドナー設計を細胞ラインの修復バイアスに合わせる必要があります。
よくある質問
なぜ種のリファレンスゲノムだけでは不十分なのですか?
種のリファレンスゲノムだけでは、培養肉の遺伝子編集には不十分です。それは一般的な地図を提供しますが、作業している細胞ラインの実際の生物学を示していません。
そのギャップは重要です。農業種では、プロモーター、エンハンサー、非翻訳領域などの重要な調節要素が依然として十分に特徴付けられていないことがよくあります。したがって、リファレンスゲノムが紙上で完全に見えても、特定の遺伝子座が細胞でどのように振る舞うかを示していない可能性があります。
また、倍数性、アレルパターン、修復経路バイアスなど、編集結果に直接影響を与える細胞ライン固有の違いも省略されています。その情報がなければ、研究者は編集結果を信頼性を持って予測したり、懸濁成長や効率的な増殖のような特性を調整することができません。
すべてのアレルが実際に編集されたかどうかを知るにはどうすればよいですか?
培養肉の細胞株で全てのアレルが編集されたことを確認するには、定期的に遺伝子モニタリングを行ってください。全ゲノムシーケンシングは、各遺伝子座にわたる配列変化の広範なビューを提供し、編集が予想通りに行われたかどうか、またその過程で他に何かが変わったかどうかを確認するのに役立ちます。
エクソームシーケンシングは、その後、編集がホモ接合型か ヘテロ接合型かを示すことで、接合性を判断するのに役立ちます。.
ノックインよりノックアウトを選ぶのはいつですか?
遺伝子をオフにして細胞特性を改善することが主な目的である場合、ノックアウトを選択してください。 培養肉では、チームは細胞代謝を変えることで、成長を早めたり、不死化したり、入力ニーズを低減したりするためにこれを使用することがよくあります。
新しい遺伝情報を追加したり、有用なタンパク質の発現を促進したりする必要がある場合は、 ノックインを選択してください。簡単に言えば、選択は次のようになります:障壁を取り除くのか、新しい機能を追加するのか?


