

Als ik ontwerp vanuit de soortreferentie in plaats van de oprichterslijn, kan ik het doel missen voordat ik zelfs maar gidsen bestel.
Voor bioprocesingenieurs, celkweekwetenschappers en gekweekt vlees R&D-teams is het kernpunt eenvoudig: het succes van de bewerking hangt af van de exacte cellijn voor me, niet de soortnaam op het etiket. In dit artikel beperk ik het beslissingspad tot zes controles: kwaliteit van genoomassemblage, ploïdie, allelvariatie, PAM-toegang, reparatievoorkeur en donordesign. Dat is van belang voor beide bewerkingsklassen: knockouts kunnen meer reparatievariabiliteit verdragen, terwijl knock-ins veel meer afhankelijk zijn van locusvolgorde en donormatching.
Een paar praktische punten vallen meteen op:
- Sequencen de oprichterslijn eerst, ontwerp dan gidsen vanuit die sequentie.
- Tel alle allelen op de locus voordat je een knockout compleet noemt.
- Controleer PAM-toegang op elk allel, niet alleen op het referentiegenoom.
- Verwacht soortverschillen in reparatie, met NHEJ die vaak domineert in rund- en varkenssomatische lijnen.
- Stem donortemplates af op stichterhaplotypes voor knock-ins.
- Her-sequenceer gepasseerde lijnen als drift de gidsbinding of bewerkingsuitlezing zou kunnen beïnvloeden.
Eén resultaat in het artikel geeft dit onmiddellijke proces relevantie: NF2 knock-out werd gerapporteerd om de verdubbelingstijd met 5%–100% te verminderen in varkens- en rundermyoblasten en ADSC's, terwijl het ook de aanpassing aan suspensie ondersteunt. Maar dat soort resultaat betekent niet dat één CRISPR plan zonder herwerking van toepassing is op runderen, varkens, vogels en vissen.
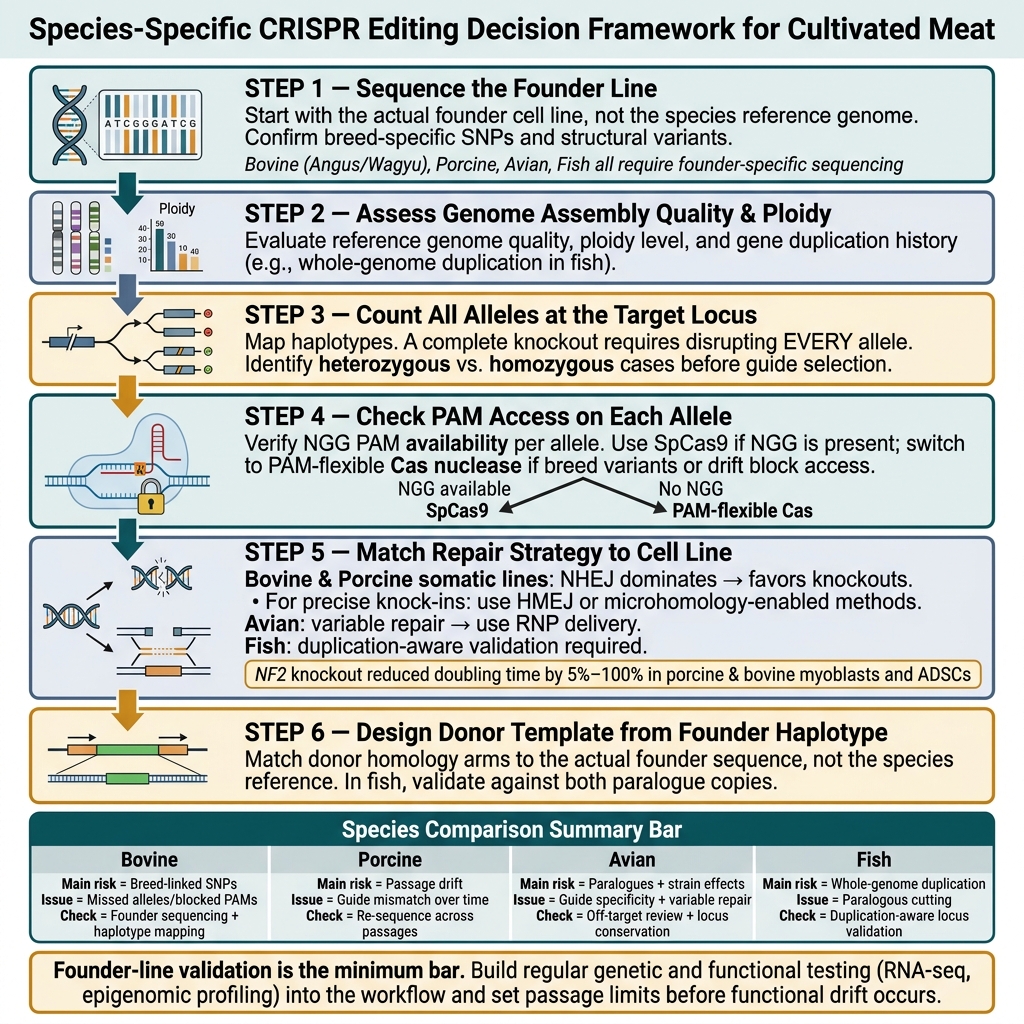
Soortspecifieke CRISPR-bewerkingsworkflow voor gekweekt vlees
Snelle vergelijking
| Soort | Belangrijkste ontwerprisico | Belangrijkste bewerkingsprobleem | Wat ik als eerste zou controleren |
|---|---|---|---|
| Rund | Ras-gebonden SNP's en structurele varianten | Gemiste allelen en geblokkeerde PAM's | Sequencing van de oprichterslijn en haplotype mapping |
| Varken | Drift over passages | Gidsmismatch in de loop van de tijd | Her-sequencing over passages |
| Vogel | Paralogen en stam effecten | Gidsspecificiteit en variabele reparatie | Locusconservatie en off-target beoordeling |
| Vis | Hele-genoomduplicatie | Paraloge knip en moeilijk leesbare uitkomsten | Duplicatie-bewuste locusvalidatie |
Dus, als ik een schoon bewerkingsplan wil voor gekweekte vlees cellen, begin ik met het oprichtersgenoom, verifieer ik de alleelstructuur, kies ik een nuclease dat de locatie kan bereiken, en beslis ik pas daarna of de cellijn beter geschikt is voor een knockout of een precieze insertie.
sbb-itb-ffee270
Referentie genomen, ploïdie en genduplicatie bepalen de startbeperkingen
Begin met de oprichterlijnsequentie, niet de soortreferentie. Dat lijkt een klein onderscheid, maar in de praktijk verandert het het hele bewerkingsplan.
Allelenaantal en lokale sequentievariatie vertellen je of een knockout überhaupt bewerkbaar is. Tel de allelen voordat je gidsen kiest: een functionele knockout betekent het verstoren van elk allel op de doelplaats, dus je moet heterozygote van homozygote gevallen scheiden voordat je gidsen selecteert [1]. Die stap verkleint de gidszoekruimte voordat je zelfs bij PAM-beschikbaarheid komt.
Boviene en porcine genomen: heterozygositeit, pangenomen en rasgebonden structurele variatie
Bij runderen is rasgebonden variatie een serieuze beperking. Angus- en Wagyu-lijnen kunnen verschillende SNP-patronen en structurele varianten bevatten, dus een referentiegenoom van één soort kan de sequentie missen die daadwerkelijk aanwezig is in de oprichtersgroep. Ivy Farm Technologies heeft dit aangepakt door de oprichterslijn te sequencen en de bewerking in Angus- en Wagyu-groepen te bevestigen [1].
Voor porcine lijnen, is de veiligste route om de oprichterslijn direct te sequencen en deze vervolgens opnieuw te sequencen over passages. Lijnspecifieke variatie en drift in cultuur kunnen beide het ontwerp van de gids verstoren en latere bewerkingsverificatie rommelig maken [1] [4].
Zodra de oprichtersvolgorde is bevestigd, is de volgende controle eenvoudig: heeft de doelsite een bruikbare PAM?
Vogel- en visgenomen: paralogen, selectieve sweeps en whole-genoomduplicatie
Bij vogelsoorten kunnen stamgebonden selectieve sweeps de sequentiediversiteit op doel-loci verwijderen. Bovendien moeten paraloge kopieën die zijn geërfd van oudere duplicatiegebeurtenissen worden gecontroleerd op gids-specificiteit voordat het ontwerp verder gaat.
Vissen voegen een extra laag toe. Whole-genoomduplicatie heeft behouden dubbele genkopieën achtergelaten in veel genomen, dus een gids gericht op één kopie kan ook andere loci knippen, tenzij off-target screening rekening houdt met die duplicatiegeschiedenis.
Wanneer de oprichtercelijn opnieuw sequencen voordat gidsen worden ontworpen
Opnieuw sequencen is nodig wanneer het startmateriaal heterogeen is of wanneer de lijn enige tijd in continue cultuur heeft doorgebracht.Hele-genoom- of exoomsequencing geeft het duidelijkste beeld, en donorhomologiearmen moeten overeenkomen met de werkelijke oprichterssequentie voordat een knock-in-programma [2] [4].
| Soort | Primaire genomische uitdaging | Aanbevolen sequencing actie |
|---|---|---|
| Bovine (Angus/Wagyu) | Ras-specifieke SNP's en structurele varianten | Gerichte sequencing of WGS van de oprichterslijn om gRNA-overeenkomst te bevestigen [1] |
| Porcine myoblasten | Hoge SNP-dichtheid en snelle verdubbelingsdrift | Her-sequencen over passages met NGS [1] [4] |
| Vis / mariene soorten | Hele-genoomduplicatie en behouden dubbele kopieën | De novo assemblage of diep her-sequencen van de oprichterslijn [2] |
Nadat de oprichterssequentie is vastgelegd, bepalen allelvariatie en PAM-beschikbaarheid wat targetbaar is.In eenvoudige termen bepalen alleel-specifieke mismatches en PAM-frequentie welke loci überhaupt kunnen worden geknipt.
Alleelvariatie en PAM-beschikbaarheid bepalen welke bewerkingen realistisch gericht kunnen worden.
Zodra de oorspronkelijke sequentie is vastgesteld, is de volgende vraag eenvoudig: kan elk alleel nog steeds op die locatie worden bewerkt, en is er een bruikbare PAM? In de praktijk komt het ontwerpen van gidsen neer op twee controles: haplotypeconservatie en PAM-toegang.
Het vermijden van alleel-specifieke knipbeurten bij runderen, varkens, kippen en vissen
Een polymorfisme ergens in de 20-nucleotide protospacer, of direct bij de PAM, kan voorkomen dat één alleel wordt geknipt. Dat kan resulteren in een gemengde celpool waar gedeeltelijke knipbeurten eruitzien als een lage bewerkingsefficiëntie, terwijl het werkelijke probleem alleeluitval tijdens het knippen is.
De oplossing is eenvoudig.Volg de sequentie van de doel-locus in de oprichterslijn, kaart de haplotypes in kaart en vergrendel alleen gidsen in regio's die volledig geconserveerd zijn over alle geïdentificeerde allelen. Controleer vervolgens de locus opnieuw na uitgebreide passage.
Als de site niet geconserveerd is over haplotypes, maakt de keuze van PAM niet uit.
Wanneer SpCas9 voldoende is en wanneer PAM-flexibele nucleasen nodig zijn
Als een NGG PAM aanwezig is, is SpCas9 de standaardkeuze. Als deze afwezig is, moet u ofwel het doel herontwerpen of overstappen naar een PAM-flexibele Cas-nuclease. Die beslissing moet komen van de oprichterssequentie, niet van het referentiegenoom.
Soortenvergelijking: doelgerichtheid en nuclease-geschiktheid in één oogopslag
| Soorten | Algemene celtypen voor bewerking | Doelgerichtheidsbeperking | Beste nuclease-geschiktheid |
|---|---|---|---|
| Rund | Myoblasten, ADSCs, iPSCs | Rasgebonden SNPs (e.g. , Angus vs. Wagyu) [1] | SpCas9 waar NGG beschikbaar is; PAM-flexibele Cas waar rasvarianten toegang blokkeren |
| Varken | Myoblasten, Fibroblasten | Snelle cultuurdrift over passages [1] | SpCas9; overschakelen naar PAM-flexibele Cas als drift de PAM-site verandert |
| Vogel | Satellietcellen, Embryonale Stamcellen | Genetische drift in continue cultuur [4] | PAM-flexibele Cas heeft de voorkeur waar paraloge overlap de specificiteit van SpCas9 beperkt |
| Vis | Myoblasten (Forel, Karper, Makreel) | Hele-genoomduplicatie en paralogen [3] | PAM-flexibele Cas om gedupliceerde loci te navigeren |
Zodra een site targetbaar is, bepaalt de reparatiebias of de bewerking een knockout of een knock-in wordt.
Reparatiepadbias en donorontwerp bepalen knockout- en knock-in-uitkomsten
Een gids kan netjes snijden en toch het doel missen als de cel de breuk op de verkeerde manier repareert. Die reparatiebias bepaalt vaak of je eindigt met een knockout, een gemengd indel-profiel of een precieze knock-in. In de kweekvleesindustrie, waar somatische lijnen zoals myoblasten en uit vetweefsel afgeleide stamcellen (ADSC's) het dagelijkse materiaal zijn, kan die bias bepalen of een bewerkingsprogramma doorgaat of vastloopt.
NHEJ, HDR en HMEJ bias in zoogdier-, vogel- en viscellijnen
Na het knippen is de belangrijkste kwestie welk reparatiepad domineert in de productielijn. In rund- en varkenssomatische lijnen is Non-Homologous End Joining (NHEJ) meestal de hoofdroute.Dat maakt eenvoudige knockouts beter haalbaar dan precieze inserties, vooral wanneer het doel is om een gen te verstoren om de verdubbelingstijd te verkorten of de aanpassing aan suspensie te bevorderen. Ivy Farm Technologies toonde dit direct aan: CRISPR/Cas9 knockouts van het endogene NF2 gen in porcine en bovine myoblasten en ADSC's verminderden de verdubbelingstijden en ondersteunden de aanpassing aan suspensie, een cruciale stap voor opschaling van gekweekt vlees [1].
Homology-Directed Repair (HDR) kan werken in deze lijnen, maar de efficiëntie is vaak laag tenzij het systeem zorgvuldig is afgestemd. Wanneer een precieze insertie nodig is, kunnen Homology-Mediated End Joining (HMEJ) of andere microhomologie-geactiveerde methoden betere integratiepercentages geven. Het belangrijkste punt is simpel: test het reparatiegedrag in het daadwerkelijke productieceltype. Passeren en aanpassing aan suspensie kunnen de bewerkingsresultaten in de loop van de tijd verschuiven [1][4].
Aviaire cellen kunnen goed bewerken, maar de reparatie-uitkomsten variëren vaak meer van run tot run. Vislijnen bewerken ook vaak goed, maar duplicatie-bewuste validatie is belangrijk omdat paralogen de ware bewerking kunnen verbergen [3].
Donorsjabloonontwerp per soort: formaat en allelmatching
Voor knock-ins moet het donorontwerp het reparatiepad volgen, niet alleen het referentiegenoom. Stem de donor af op het stichterhaplotype in plaats van op de soortreferentie. In heterozygote rund- en varkenslijnen kan een donor die alleen is opgebouwd uit de referentiesequentie één allel missen [1].
Bij vissen is een duplicatie-bewust ontwerp een must omdat paralogen de uitlezing van de bewerking kunnen compliceren. Controleer zowel de gids als de donor tegen de exacte locus die je wilt veranderen in plaats van aan te nemen dat één referentiesequentie het hele verhaal vertelt.
Reparatiebias en knock-in ontwerp per soort: vergelijkingstabel
De onderstaande tabel zet die reparatieverschillen om in ontwerpkeuzes op soortniveau.
| Soort | Dominante reparatietendens | Belangrijkste uitdaging voor precieze insertie | Voorkeursdonor of reparatiestrategie | Belangrijkste optimalisatiehefboom |
|---|---|---|---|---|
| Rund | NHEJ | Lage HDR-efficiëntie in somatische myoblasten en ADSC's | dsDNA of ssODN; HMEJ voor precieze insertie | Oprichter haplotype matching |
| Varken | NHEJ | Alleel-specifieke matching; beperkte in vitro levensduur | Alleel-gematchte donor of knockout, afhankelijk van het bewerkingsdoel | Alleel-gematcht donorontwerp |
| Vogel | Mechanisme-afhankelijk | Variabele reparatie-uitkomsten | RNP-levering voor gecontroleerde reparatie | RNP-levering voor strakkere timingcontrole |
| Vis | Efficiënte bewerking, pad variabel | Hele-genoomduplicatie; paraloge interferentie | Duplicatie-bewuste gids en donorontwerp | Beide paraloge kopieën valideren |
Conclusie: een beslissingskader voor soortspecifieke CRISPR bewerking in gekweekt vlees
De praktische beslissingsregel is eenvoudig: sequentieer de oprichterlijn, bevestig de locusstructuur, controleer alleelvariatie, kies een PAM-compatibele nuclease, en stem de reparatiestrategie af op de cellijn.
Die workflow werkt op het soortniveau, maar variatie in de oprichterslijn verschuift nog steeds het resultaat. Simpel gezegd, standaardinstellingen op soortniveau worden niet betrouwbaar overgedragen van de ene oprichterslijn naar de andere. Validatie van de oprichterslijn is de minimale eis [1].
Er is nog een punt dat teams niet licht kunnen opvatten. Continue cultuur kan genetische drift in de loop van de tijd introduceren, wat betekent dat het bewerkingsplan dat bij een eerdere passage werkte, zich later mogelijk niet op dezelfde manier gedraagt. Daarom moeten teams regelmatige genetische en functionele tests in de workflow opnemen, inclusief RNA-sequencing en epigenomische profilering, en een passagegrens instellen voordat de functie begint af te wijken [4].
Belangrijke punten voor R&D-, productie- en inkoopteams
Voor teams die deze workflow in de praktijk brengen, zijn de prioriteiten vrij duidelijk.
- R&D-teams moeten vroeg beginnen met sequencen en ontwerpen vanuit de oprichterslijn.
- Productieteams moeten het donorontwerp afstemmen op de reparatievoorkeur van de cellijn.
Veelgestelde vragen
Waarom is het referentiegenoom van de soort niet voldoende?
Een referentiegenoom van een soort is niet voldoende voor genbewerking van gekweekt vlees. Het geeft je een algemene kaart, maar niet de daadwerkelijke biologie van de cellijn waarmee je werkt.
Die kloof is belangrijk. Bij landbouwsoorten zijn belangrijke regulerende elementen zoals promotoren, enhancers en niet-vertaalde regio's vaak nog slecht gekarakteriseerd. Dus zelfs als een referentiegenoom op papier compleet lijkt, vertelt het je misschien niet hoe een bepaalde locus zich in je cellen gedraagt.
Het laat ook cellijnspecifieke verschillen weg die direct van invloed zijn op de bewerkingsresultaten, waaronder ploïdie, allelpatronen en reparatiepadvoorkeur.Zonder die informatie kunnen onderzoekers de uitkomsten van bewerkingen niet betrouwbaar voorspellen of eigenschappen zoals suspensiegroei en efficiënte proliferatie afstemmen.
Hoe weet ik of elk allel daadwerkelijk is bewerkt?
Om te bevestigen dat elk allel is bewerkt in uw gekweekte vleescellijnen, voert u op regelmatige tijdstippen genetische monitoring uit. Hele-genoomsequencing geeft u een breed overzicht van sequentieveranderingen over elk locus, wat u helpt te controleren of de bewerking plaatsvond waar u verwachtte en of er onderweg iets anders is veranderd.
Exoomsequencing kan vervolgens helpen om de zygositeit te bepalen, waarbij wordt getoond of de bewerking homozygoot of heterozygoot is..
Wanneer moet ik kiezen voor een knockout in plaats van een knock-in?
Kies een knockout wanneer uw hoofddoel is om een gen uit te schakelen en een celeigenschap te verbeteren.In gekweekt vlees gebruiken teams dit vaak om snellere groei, immortaliteit of lagere inputbehoeften te ondersteunen door de cellulaire stofwisseling te verschuiven.
Kies een knock-in wanneer je nieuwe genetische informatie moet toevoegen of de expressie van een nuttig eiwit wilt verhogen. Simpel gezegd, de keuze komt hierop neer: verwijder je een barrière, of voeg je een nieuwe functie toe?


