

Jika saya mendesain dari referensi spesies alih-alih garis pendiri, saya bisa melewatkan target sebelum saya bahkan memesan panduan.
Bagi insinyur bioproses, ilmuwan kultur sel, dan tim R&D daging budidaya, inti dari poin ini sederhana: keberhasilan pengeditan bergantung pada garis sel yang tepat di depan saya, bukan nama spesies pada label. Dalam artikel ini, saya mempersempit jalur keputusan menjadi enam pemeriksaan: kualitas perakitan genom, ploidi, variasi alel, akses PAM, bias perbaikan, dan desain donor. Hal ini penting untuk kedua kelas pengeditan: knockout dapat mentolerir lebih banyak variabilitas perbaikan, sementara knock-in jauh lebih bergantung pada urutan lokus dan pencocokan donor.
Beberapa poin praktis langsung menonjol:
- Urutkan garis pendiri terlebih dahulu, kemudian desain panduan dari urutan tersebut.
- Hitung semua alel pada lokus sebelum menyatakan knockout selesai.
- Periksa akses PAM pada setiap alel, bukan hanya pada genom referensi.
- Harapkan perbedaan spesies dalam perbaikan, dengan NHEJ sering mendominasi pada garis somatik sapi dan babi.
- Cocokkan templat donor dengan haplotipe pendiri untuk knock-ins.
- Re-sekuens garis yang telah dilewatkan jika pergeseran dapat mempengaruhi pengikatan panduan atau pembacaan edit.
Satu hasil dalam artikel memberikan relevansi proses langsung ini: knockout NF2 dilaporkan mengurangi waktu penggandaan sebesar 5%–100% pada mioblas dan ADSC babi dan sapi, sambil juga mendukung adaptasi suspensi. Tetapi hasil semacam itu tidak berarti satu rencana CRISPR dapat diterapkan pada sapi, babi, burung, dan ikan tanpa pengerjaan ulang.
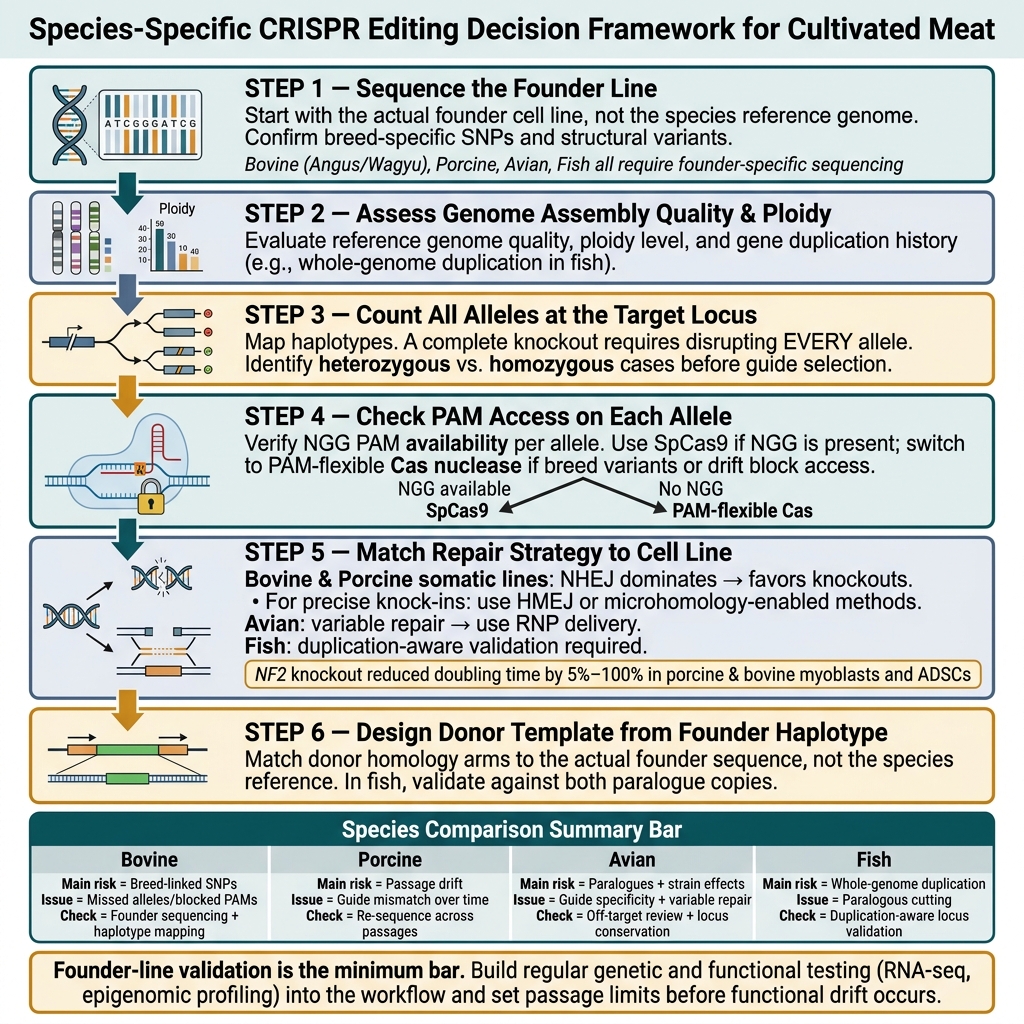
Alur Kerja Pengeditan CRISPR Spesifik Spesies untuk Daging Budidaya
Perbandingan cepat
| Spesies | Risiko desain utama | Masalah pengeditan utama | Apa yang akan saya periksa terlebih dahulu |
|---|---|---|---|
| Sapi | SNP terkait ras dan varian struktural | Alel yang terlewat dan PAM yang terblokir | Sekuensing garis pendiri dan pemetaan haplotipe |
| Babi | Drift antar pasase | Ketidakcocokan panduan seiring waktu | Re-sekuensing antar pasase |
| Unggas | Paralog dan efek strain | Spesifisitas panduan dan perbaikan variabel | Konservasi lokus dan tinjauan off-target |
| Ikan | Duplikasi genom keseluruhan | Pemotongan paralog dan hasil yang sulit dibaca | Validasi lokus yang sadar duplikasi |
Jadi, jika saya menginginkan rencana pengeditan yang bersih untuk sel daging budidaya, saya mulai dengan genom pendiri, memverifikasi struktur alel, memilih nuklease yang dapat mencapai situs tersebut, dan baru kemudian memutuskan apakah garis sel lebih cocok untuk knockout atau penyisipan yang tepat.
sbb-itb-ffee270
Genom referensi, ploidi, dan duplikasi gen menetapkan batasan awal
Mulailah dengan urutan garis pendiri, bukan referensi spesies. Itu terdengar seperti perbedaan kecil, tetapi dalam praktiknya itu mengubah seluruh rencana pengeditan.
Jumlah alel dan variasi urutan lokal memberi tahu Anda apakah sebuah knockout dapat diedit sejak awal. Hitung alel sebelum Anda memilih panduan: knockout fungsional berarti mengganggu setiap alel di lokus target, jadi Anda perlu memisahkan kasus heterozigot dari homozigot sebelum pemilihan panduan [1]. Langkah itu memperkecil ruang pencarian panduan sebelum Anda bahkan mencapai ketersediaan PAM.
Genom sapi dan babi: heterozigositas, pangenom, dan variasi struktural terkait ras
Pada sapi, variasi terkait ras adalah batasan serius. Lini Angus dan Wagyu dapat membawa pola SNP dan varian struktural yang berbeda, sehingga satu genom referensi spesies mungkin melewatkan urutan yang sebenarnya ada dalam kumpulan pendiri. Ivy Farm Technologies menangani ini dengan melakukan pengurutan pada garis pendiri dan mengonfirmasi pengeditan pada kumpulan Angus dan Wagyu [1].
Untuk lini porcine, rute teraman adalah dengan mengurutkan garis pendiri secara langsung, kemudian mengurutkannya kembali di seluruh lintasan. Variasi spesifik garis dan pergeseran dalam kultur dapat mengganggu desain panduan dan membuat verifikasi pengeditan di kemudian hari menjadi rumit [1] [4].
Setelah urutan pendiri dikonfirmasi, pemeriksaan berikutnya sederhana: apakah situs target memiliki PAM yang dapat digunakan?
Genom burung dan ikan: paralog, seleksi sapuan, dan duplikasi genom keseluruhan
Pada spesies burung, seleksi sapuan yang terkait dengan strain dapat menghilangkan keragaman urutan pada lokus target. Selain itu, salinan paralog yang diwarisi dari peristiwa duplikasi sebelumnya berarti spesifisitas panduan harus diperiksa sebelum desain dilanjutkan.
Ikan menambahkan lapisan lain. Duplikasi genom keseluruhan telah meninggalkan salinan gen duplikat yang dipertahankan di banyak genom, sehingga panduan yang ditujukan pada satu salinan mungkin juga memotong lokus lain kecuali penyaringan off-target memperhitungkan sejarah duplikasi tersebut.
Kapan harus meresequencing garis sel pendiri sebelum merancang panduan
Resequencing diperlukan ketika bahan awal heterogen atau ketika garis telah menghabiskan waktu dalam kultur kontinu.Sekuen genom keseluruhan atau eksom memberikan pandangan yang paling jelas, dan lengan homologi donor perlu cocok dengan sekuens pendiri aktual sebelum program knock-in apa pun [2] [4].
| Spesies | Tantangan genomik utama | Tindakan pengurutan yang direkomendasikan |
|---|---|---|
| Sapi (Angus/Wagyu) | SNP spesifik ras dan varian struktural | Pengurutan terarah atau WGS dari garis pendiri untuk mengonfirmasi kecocokan gRNA [1] |
| Mioblas babi | Kepadatan SNP tinggi dan pergeseran penggandaan cepat | Pengurutan ulang di seluruh lintasan dengan NGS [1] [4] |
| Ikan / spesies laut | Duplikasi genom keseluruhan dan salinan duplikat yang dipertahankan | Perakitan de novo atau pengurutan ulang mendalam dari garis pendiri [2] |
Setelah urutan pendiri dikunci, variasi alel dan ketersediaan PAM menentukan apa yang dapat ditargetkan.Dalam istilah sederhana, ketidakcocokan spesifik alel dan frekuensi PAM menentukan lokus mana yang dapat dipotong sama sekali.
Variasi alel dan ketersediaan PAM menentukan pengeditan mana yang secara realistis dapat ditargetkan
Setelah urutan pendiri ditetapkan, pertanyaan berikutnya sederhana: apakah setiap alel masih dapat diedit di situs tersebut, dan apakah ada PAM yang dapat digunakan? Dalam praktiknya, desain panduan bergantung pada dua pemeriksaan: konservasi haplotipe dan akses PAM.
Menghindari pemotongan spesifik alel pada sapi, babi, ayam, dan ikan
Polimorfisme di mana saja dalam protospacer 20-nukleotida, atau tepat di PAM, dapat menghentikan satu alel dari pemotongan. Itu dapat membuat Anda dengan kumpulan sel campuran di mana pemotongan parsial terlihat seperti efisiensi pengeditan yang buruk, ketika masalah sebenarnya adalah hilangnya alel selama pemotongan.
Solusinya sederhana. Urutkan lokus target pada garis pendiri, petakan haplotipe, dan hanya kunci panduan di wilayah yang sepenuhnya terkonservasi di semua alel yang teridentifikasi. Kemudian periksa kembali lokus setelah perpanjangan pasase.
Jika situs tidak terkonservasi di seluruh haplotipe, pilihan PAM tidak masalah.
Kapan SpCas9 sudah cukup dan kapan nuklease fleksibel PAM diperlukan
Jika PAM NGG ada, SpCas9 adalah pilihan default. Jika tidak ada, Anda bisa mendesain ulang target atau beralih ke nuklease Cas fleksibel PAM. Keputusan itu harus berasal dari urutan pendiri, bukan genom referensi.
Perbandingan spesies: targetabilitas dan kecocokan nuklease sekilas
| Spesies | Jenis sel umum untuk pengeditan | Kendala targetabilitas | Kecocokan nuklease terbaik |
|---|---|---|---|
| Sapi | Myoblast, ADSC, iPSC | SNP terkait breed (e.g. , Angus vs.Wagyu) [1] | SpCas9 di mana NGG tersedia; Cas fleksibel PAM di mana varian breed menghalangi akses |
| Porcine | Myoblast, Fibroblast | Perubahan kultur cepat di seluruh pasase [1] | SpCas9; beralih ke Cas fleksibel PAM jika perubahan mengubah situs PAM |
| Avian | Sel satelit, Sel Punca Embrionik | Perubahan genetik dalam kultur kontinu [4] | Cas fleksibel PAM lebih disukai di mana tumpang tindih paralog membatasi spesifisitas SpCas9 |
| Fish | Myoblast (Trout, Carp, Mackerel) | Duplikasi genom keseluruhan dan paralog [3] | Cas fleksibel PAM untuk menavigasi lokus yang diduplikasi |
Setelah sebuah situs dapat ditargetkan, bias perbaikan menentukan apakah pengeditan menjadi knockout atau knock-in.
Bias jalur perbaikan dan desain donor mendorong hasil knockout dan knock-in
Sebuah panduan dapat memotong dengan bersih dan tetap meleset dari tujuan jika sel memperbaiki kerusakan dengan cara yang salah. Bias perbaikan tersebut sering kali menentukan apakah Anda berakhir dengan knockout, profil indel campuran, atau knock-in yang tepat. Dalam pekerjaan daging budidaya, di mana garis somatik seperti myoblast dan sel punca yang berasal dari adiposa (ADSCs) adalah bahan sehari-hari, bias tersebut dapat menentukan apakah program pengeditan bergerak maju atau terhenti.
NHEJ, HDR dan HMEJ bias di seluruh garis sel mamalia, unggas, dan ikan
Setelah pemotongan, masalah utama adalah jalur perbaikan mana yang mendominasi dalam garis sel produksi. Dalam garis somatik sapi dan babi, Non-Homologous End Joining (NHEJ) biasanya merupakan jalur utama.Hal ini membuat knockout sederhana lebih mudah dicapai daripada penyisipan yang tepat, terutama ketika tujuannya adalah untuk mengganggu gen untuk mengurangi waktu penggandaan atau membantu adaptasi suspensi. Ivy Farm Technologies menunjukkan ini secara langsung: knockout CRISPR/Cas9 dari gen endogen NF2 pada mioblas porcine dan bovine serta ADSC mengurangi waktu penggandaan dan mendukung adaptasi suspensi, langkah penting untuk skala daging budidaya [1].
Perbaikan Terarah Homologi (HDR) dapat bekerja pada garis ini, tetapi efisiensinya sering rendah kecuali sistem disetel dengan hati-hati. Ketika Anda memerlukan penyisipan yang tepat, Penggabungan Akhir Berbasis Homologi (HMEJ) atau metode lain yang mendukung mikrohomologi dapat memberikan tingkat integrasi yang lebih baik. Poin utamanya sederhana: uji perilaku perbaikan pada jenis sel produksi yang sebenarnya. Pemindahan dan adaptasi suspensi dapat mengubah hasil pengeditan seiring waktu [1][4].
Sel-sel avian dapat mengedit dengan baik, tetapi hasil perbaikan cenderung lebih bervariasi dari satu percobaan ke percobaan lainnya. Garis ikan juga sering mengedit dengan baik, tetapi validasi yang menyadari duplikasi penting karena paralog dapat menyembunyikan editan yang sebenarnya [3].
Desain template donor berdasarkan spesies: format dan pencocokan alel
Untuk knock-ins, desain donor harus mengikuti jalur perbaikan, bukan hanya genom referensi. Cocokkan donor dengan haplotipe pendiri daripada referensi spesies. Dalam garis heterozigot sapi dan babi, donor yang dibangun hanya dari urutan referensi dapat melewatkan satu alel [1].
Dalam ikan, desain yang menyadari duplikasi adalah suatu keharusan karena paralog dapat mempersulit pembacaan editan. Periksa baik panduan maupun donor terhadap lokus yang tepat yang ingin Anda ubah daripada mengasumsikan satu urutan referensi menceritakan keseluruhan cerita.
Perbaikan bias dan desain knock-in berdasarkan spesies: tabel perbandingan
Tabel di bawah ini mengubah perbedaan perbaikan tersebut menjadi pilihan desain tingkat spesies.
| Spesies | Kecenderungan perbaikan dominan | Tantangan utama untuk penyisipan tepat | Donor atau strategi perbaikan yang disukai | Tuas optimasi utama |
|---|---|---|---|---|
| Sapi | NHEJ | Efisiensi HDR rendah pada mioblas somatik dan ADSC | dsDNA atau ssODN; HMEJ untuk penyisipan tepat | Pencocokan haplotipe pendiri |
| Babi | NHEJ | Pencocokan spesifik alel; umur in vitro terbatas | Donor yang cocok dengan alel atau knockout, tergantung pada tujuan pengeditan | Desain donor yang cocok dengan alel |
| Unggas | Bergantung pada mekanisme | Hasil perbaikan yang bervariasi | Pengiriman RNP untuk perbaikan yang terkontrol | Pengiriman RNP untuk kontrol waktu yang lebih ketat |
| Ikan | Pengeditan efisien, jalur bervariasi | Duplikasi genom keseluruhan; interferensi paralog | Desain panduan dan donor yang sadar duplikasi | Validasi kedua salinan paralog |
Kesimpulan: kerangka keputusan untuk pengeditan CRISPR spesifik spesies dalam daging yang dibudidayakan
Aturan keputusan praktisnya sederhana: urutkan garis pendiri, konfirmasi struktur lokus, periksa variasi alel, pilih nuklease yang kompatibel dengan PAM, lalu sesuaikan strategi perbaikan dengan garis sel.
Alur kerja tersebut berfungsi pada tingkat spesies, tetapi variasi garis pendiri masih menggeser hasilnya. Dalam istilah sederhana, pengaturan default tingkat spesies tidak dapat diandalkan untuk dibawa dari satu garis pendiri ke garis lainnya. Validasi garis pendiri adalah batas minimum [1].
Ada poin lain yang tidak bisa dianggap enteng oleh tim. Budaya berkelanjutan dapat memperkenalkan pergeseran genetik seiring waktu, yang berarti rencana pengeditan yang berhasil pada tahap awal mungkin tidak berperilaku sama di kemudian hari. Karena itu, tim harus membangun pengujian genetik dan fungsional secara teratur ke dalam alur kerja, termasuk pengurutan RNA dan profil epigenomik, dan menetapkan batas tahap sebelum fungsi mulai bergeser [4].
Poin penting untuk tim R&D, produksi, dan pengadaan
Bagi tim yang menerapkan alur kerja ini, prioritasnya cukup jelas.
- Tim R&D harus mengurutkan lebih awal dan merancang dari garis pendiri.
- Tim produksi harus mencocokkan desain donor dengan bias perbaikan garis sel.
FAQ
Mengapa referensi genom spesies tidak cukup?
Referensi genom spesies tidak cukup untuk pengeditan gen daging yang dibudidayakan. Ini memberi Anda peta umum, tetapi bukan biologi aktual dari garis sel yang Anda kerjakan.
Kesenjangan itu penting. Dalam spesies pertanian, elemen pengatur kunci seperti promoter, enhancer, dan wilayah yang tidak diterjemahkan masih sering kurang terkarakterisasi. Jadi meskipun referensi genom terlihat lengkap di atas kertas, mungkin tidak memberi tahu Anda bagaimana lokus tertentu berperilaku dalam sel Anda.
Ini juga mengabaikan perbedaan spesifik garis sel yang secara langsung mempengaruhi hasil pengeditan, termasuk ploidy, pola alel, dan bias jalur perbaikan.Tanpa informasi tersebut, peneliti tidak dapat memprediksi hasil edit dengan andal atau menyesuaikan sifat seperti pertumbuhan suspensi dan proliferasi yang efisien.
Bagaimana saya tahu jika setiap alel benar-benar diedit?
Untuk memastikan bahwa setiap alel diedit dalam garis sel daging budidaya Anda, lakukan pemantauan genetik secara berkala. Whole-genome sequencing memberi Anda pandangan luas tentang perubahan urutan di setiap lokus, yang membantu Anda memeriksa apakah pengeditan terjadi di tempat yang Anda harapkan dan apakah ada hal lain yang berubah sepanjang jalan.
Exome sequencing kemudian dapat membantu menentukan zigositas, menunjukkan apakah editannya homozygous atau heterozygous.
Kapan saya harus memilih knockout daripada knock-in?
Pilih knockout ketika tujuan utama Anda adalah mematikan gen dan meningkatkan sifat sel.Dalam daging yang dibudidayakan, tim sering menggunakan ini untuk mendukung pertumbuhan yang lebih cepat, pengabadian, atau kebutuhan input yang lebih rendah dengan menggeser metabolisme seluler.
Pilih knock-in ketika Anda perlu menambahkan informasi genetik baru atau meningkatkan ekspresi protein yang berguna. Sederhananya, pilihan ini tergantung pada: apakah Anda menghilangkan hambatan, atau menambahkan fungsi baru?


