

Se eu projetar a partir da referência da espécie em vez da linha fundadora, posso errar o alvo antes mesmo de encomendar guias.
Para engenheiros de bioprocessos, cientistas de cultura celular e equipes de P&D de carne cultivada, o ponto central é simples: o sucesso da edição depende da linha celular exata à minha frente, não do nome da espécie no rótulo. Neste artigo, eu reduzo o caminho de decisão a seis verificações: qualidade da montagem do genoma, ploidia, variação alélica, acesso PAM, viés de reparo e design do doador. Isso é importante para ambas as classes de edição: knockouts podem tolerar mais variabilidade de reparo, enquanto knock-ins dependem muito mais da sequência do locus e da correspondência do doador.
Alguns pontos práticos se destacam imediatamente:
- Sequencie a linha fundadora primeiro, depois projete guias a partir dessa sequência.
- Conte todos os alelos no locus antes de considerar um knockout completo.
- Verifique o acesso PAM em cada alelo, não apenas no genoma de referência.
- Espere diferenças entre espécies na reparação, com NHEJ frequentemente dominando em linhas somáticas bovinas e suínas.
- Combine modelos doadores com haplótipos fundadores para knock-ins.
- Re-sequencie linhas passadas se a deriva puder afetar a ligação do guia ou a leitura da edição.
Um resultado no artigo dá relevância imediata a este processo: foi relatado que o knockout de NF2 reduziu o tempo de duplicação em 5%–100% em mioblastos e ADSCs suínos e bovinos, enquanto também apoiava a adaptação à suspensão. Mas esse tipo de resultado não significa que um plano CRISPR se aplica a gado, porcos, aves e peixes sem retrabalho.
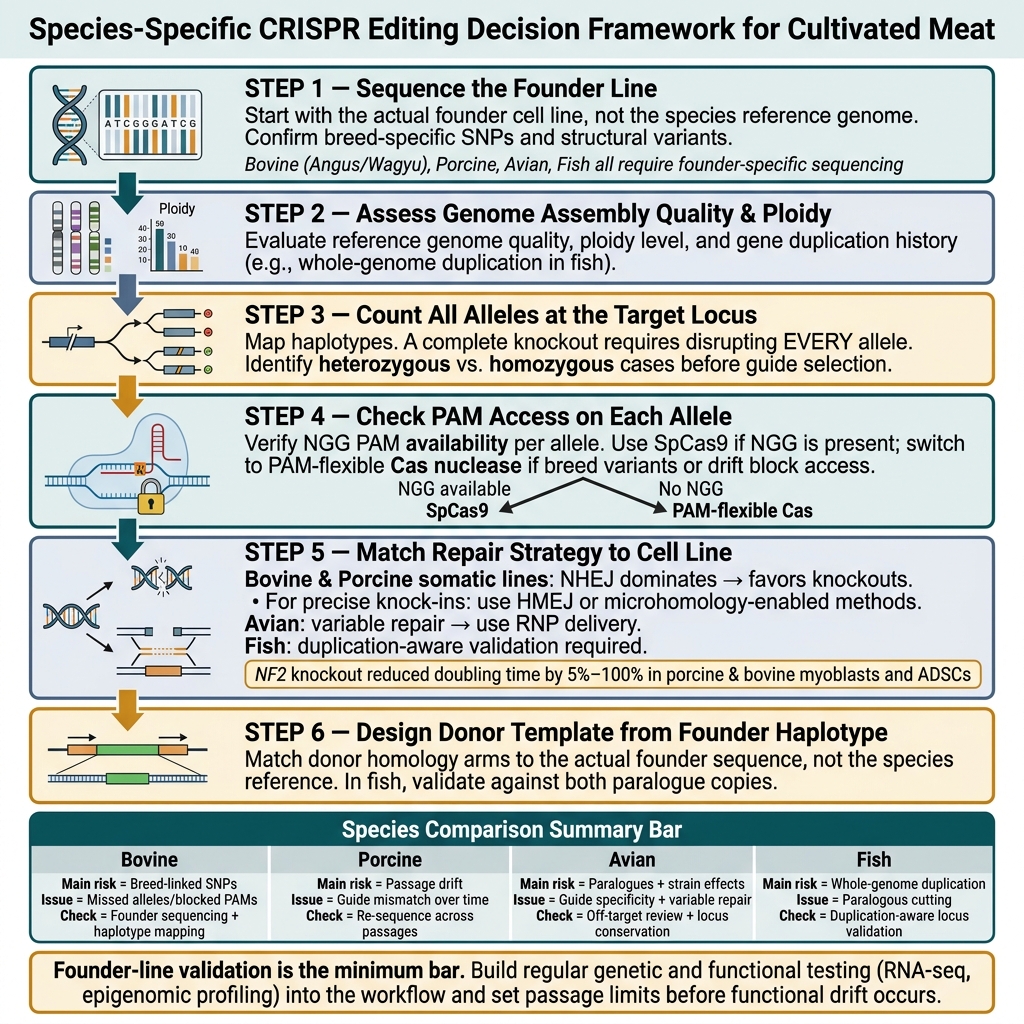
Fluxo de Trabalho de Edição CRISPR Específico para Espécies para Carne Cultivada
Comparação rápida
| Espécies | Principal risco de design | Principal problema de edição | O que eu verificaria primeiro |
|---|---|---|---|
| Bovino | SNPs ligados à raça e variantes estruturais | Alelos perdidos e PAMs bloqueados | Sequenciamento da linha fundadora e mapeamento de haplótipos |
| Suíno | Deriva ao longo das passagens | Desajuste do guia ao longo do tempo | Re-sequenciamento ao longo das passagens |
| Aves | Parálogos e efeitos de cepa | Especificidade do guia e reparo variável | Conservação do locus e revisão fora do alvo |
| Peixe | Duplicação do genoma completo | Corte paralógico e resultados difíceis de ler | Validação do locus ciente da duplicação |
Então, se eu quiser um plano de edição limpo para células de carne cultivada, começo com o genoma fundador, verifico a estrutura do alelo, escolho uma nucleasse que possa alcançar o local e só então decido se a linha celular é mais adequada para um knockout ou uma inserção precisa.
sbb-itb-ffee270
Genomas de referência, ploidia e duplicação de genes definem as restrições iniciais
Comece com a sequência da linha fundadora, não a referência da espécie. Isso parece uma pequena distinção, mas na prática muda todo o plano de edição.
Contagem de alelos e variação de sequência local indicam se um knockout é editável em primeiro lugar. Conte os alelos antes de escolher os guias: um knockout funcional significa destruir todos os alelos no locus alvo, então você precisa separar casos heterozigotos de homozigotos antes da seleção de guias [1]. Esse passo reduz o espaço de busca de guias antes mesmo de você chegar à disponibilidade de PAM.
Genomas bovinos e suínos: heterozigosidade, pangenomas e variação estrutural ligada à raça
Em bovinos, a variação ligada à raça é uma séria restrição. Linhas de Angus e Wagyu podem apresentar diferentes padrões de SNP e variantes estruturais, então um genoma de referência de uma espécie pode não incluir a sequência que está presente no pool fundador. Ivy Farm Technologies lidou com isso sequenciando a linha fundadora e confirmando a edição nos pools de Angus e Wagyu [1].
Para linhas suínas, o caminho mais seguro é sequenciar diretamente a linha fundadora e, em seguida, re-sequenciá-la ao longo das passagens. A variação específica da linha e a deriva na cultura podem ambos atrapalhar o design do guia e tornar a verificação da edição posterior complicada [1] [4].
Uma vez que a sequência do fundador é confirmada, a próxima verificação é simples: o site alvo tem um PAM utilizável?
Genomas de aves e peixes: paralogos, varreduras seletivas e duplicação de genoma completo
Em espécies de aves, varreduras seletivas ligadas a cepas podem remover a diversidade de sequência em loci alvo. Além disso, cópias de paralogos herdadas de eventos de duplicação mais antigos significam que a especificidade do guia deve ser verificada antes que o design avance.
Os peixes adicionam outra camada. A duplicação de genoma completo deixou cópias de genes duplicados retidas em muitos genomas, então um guia direcionado a uma cópia pode também cortar outros loci, a menos que a triagem fora do alvo leve em conta essa história de duplicação.
Quando re-sequenciar a linha celular fundadora antes de projetar guias
O re-sequenciamento é necessário quando o material inicial é heterogêneo ou quando a linha passou tempo em cultura contínua.O sequenciamento do genoma completo ou do exoma oferece a visão mais clara, e os braços de homologia do doador precisam corresponder à sequência real do fundador antes de qualquer programa de knock-in [2] [4].
| Espécies | Desafio genômico primário | Ação de sequenciamento recomendada |
|---|---|---|
| Bovino (Angus/Wagyu) | SNPs específicos da raça e variantes estruturais | Sequenciamento direcionado ou WGS da linha fundadora para confirmar correspondência de gRNA [1] |
| Mioblastos suínos | Alta densidade de SNPs e desvio rápido de duplicação | Re-sequenciar através de passagens com NGS [1] [4] |
| Peixes / espécies marinhas | Duplicação do genoma completo e cópias duplicadas retidas | Montagem de novo ou re-sequenciamento profundo da linha fundadora [2] |
Após a sequência fundadora ser definida, a variação alélica e a disponibilidade de PAM decidem o que é alvo.Em termos simples, incompatibilidades específicas de alelos e a frequência de PAM determinam quais loci podem ser cortados.
A variação de alelos e a disponibilidade de PAM determinam quais edições são realisticamente alvo.
Uma vez que a sequência fundadora é fixada, a próxima pergunta é simples: todos os alelos ainda podem ser editados nesse local, e há um PAM utilizável? Na prática, o design do guia se resume a duas verificações: conservação do haplótipo e acesso ao PAM.
Evitando cortes específicos de alelos em gado, porcos, galinhas e peixes
Um polimorfismo em qualquer lugar do protospacer de 20 nucleotídeos, ou bem no PAM, pode impedir que um alelo seja cortado. Isso pode deixá-lo com uma mistura de células onde o corte parcial parece baixa eficiência de edição, quando o problema real é a perda de alelos durante o corte.
A solução é simples.Sequencie o locus alvo na linha fundadora, mapeie os haplótipos e bloqueie guias apenas em regiões que são totalmente conservadas em todos os alelos identificados. Em seguida, verifique novamente o locus após passagens prolongadas.
Se o site não for conservado entre os haplótipos, a escolha do PAM não importa.
Quando SpCas9 é suficiente e quando são necessárias nucleases flexíveis ao PAM
Se um PAM NGG estiver presente, SpCas9 é a escolha padrão. Se estiver ausente, você deve redesenhar o alvo ou mudar para uma nuclease Cas flexível ao PAM. Essa decisão deve vir da sequência fundadora, não do genoma de referência.
Comparação de espécies: direcionabilidade e ajuste de nucleases em um relance
| Espécies | Tipos comuns de células para edição | Restrição de direcionabilidade | Melhor ajuste de nucleases |
|---|---|---|---|
| Bovino | Mioblastos, ADSCs, iPSCs | SNPs ligados à raça (e.g. , Angus vs.Wagyu) [1] | SpCas9 onde NGG está disponível; Cas flexível para PAM onde variantes de raça bloqueiam o acesso |
| Suíno | Mioblastos, Fibroblastos | Deriva rápida de cultura através de passagens [1] | SpCas9; mudar para Cas flexível para PAM se a deriva alterar o local PAM |
| Aves | Células satélite, Células-tronco embrionárias | Deriva genética em cultura contínua [4] | Cas flexível para PAM preferido onde a sobreposição de paralogos limita a especificidade do SpCas9 |
| Peixes | Mioblastos (Truta, Carpa, Cavala) | Duplicação do genoma completo e paralogos [3] | Cas flexível para PAM para navegar em loci duplicados |
Uma vez que um local é alvo, o viés de reparo determina se a edição se torna um knockout ou um knock-in.
Viés de via de reparo e design de doador impulsionam os resultados de knockout e knock-in
Um guia pode cortar de forma limpa e ainda assim falhar no objetivo se a célula reparar a quebra de maneira errada. Esse viés de reparo muitas vezes decide se você acaba com um knockout, um perfil de indel misto ou um knock-in preciso. No trabalho com carne cultivada, onde linhas somáticas como mioblastos e células-tronco derivadas de adiposo (ADSCs) são o material do dia a dia, esse viés pode decidir se um programa de edição avança ou estagna.
NHEJ, HDR e HMEJ viés em linhas celulares de mamíferos, aves e peixes
Após a clivagem, a principal questão é qual via de reparo domina na linha celular de produção. Em linhas somáticas bovinas e suínas, a Junção Final Não Homóloga (NHEJ) é geralmente a principal rota.Isso torna os knockouts simples mais alcançáveis do que inserções precisas, especialmente quando o objetivo é interromper um gene para reduzir o tempo de duplicação ou ajudar na adaptação à suspensão. A Ivy Farm Technologies demonstrou isso diretamente: knockouts CRISPR/Cas9 do gene endógeno NF2 em mioblastos e ADSCs suínos e bovinos diminuíram os tempos de duplicação e apoiaram a adaptação à suspensão, um passo crítico para escalar carne cultivada [1].
A Reparação Dirigida por Homologia (HDR) pode funcionar nessas linhas, mas a eficiência é frequentemente baixa, a menos que o sistema seja ajustado cuidadosamente. Quando você precisa de uma inserção precisa, a Junção Mediada por Homologia (HMEJ) ou outros métodos habilitados por microhomologia podem oferecer melhores taxas de integração. O ponto principal é simples: testar o comportamento de reparo no tipo de célula de produção real. A passagem e a adaptação à suspensão podem alterar os resultados da edição ao longo do tempo [1][4].
As células aviárias podem editar bem, mas os resultados das reparações tendem a variar mais de execução para execução. As linhas de peixes também costumam editar bem, mas a validação consciente de duplicações é importante porque os paralogos podem esconder a verdadeira edição [3].
Design de modelo doador por espécie: formatação e correspondência de alelos
Para inserções, o design do doador deve seguir a via de reparo, não apenas o genoma de referência. Combine o doador com o haplótipo fundador em vez da referência da espécie. Em linhas bovinas e suínas heterozigotas, um doador construído apenas a partir da sequência de referência pode perder um alelo [1].
Em peixes, o design consciente de duplicações é essencial porque os paralogos podem complicar a leitura da edição. Verifique tanto o guia quanto o doador em relação ao locus exato que você deseja alterar, em vez de assumir que uma sequência de referência conta toda a história.
Reparar viés e design de knock-in por espécie: tabela comparativa
A tabela abaixo transforma essas diferenças de reparo em escolhas de design a nível de espécie.
| Espécies | Tendência dominante de reparo | Principal desafio para inserção precisa | Estratégia de doador ou reparo preferida | Alavanca chave de otimização |
|---|---|---|---|---|
| Bovino | NHEJ | Baixa eficiência de HDR em mioblastos somáticos e ADSCs | dsDNA ou ssODN; HMEJ para inserção precisa | Correspondência de haplótipo fundador |
| Suíno | NHEJ | Correspondência específica de alelo; vida útil limitada in vitro | Doador correspondente ao alelo ou knockout, dependendo do objetivo da edição | Design de doador correspondente ao alelo |
| Aves | Mecanismo-dependente | Resultados de reparo variáveis | Entrega de RNP para reparo controlado | Entrega de RNP para controle de tempo mais rigoroso |
| Peixes | Edição eficiente, via variável | Duplicação do genoma inteiro; interferência de paralogos | Design de guia e doador ciente da duplicação | Validar ambas as cópias de paralogos |
Conclusão: um quadro de decisão para edição CRISPR específica de espécies em carne cultivada
A regra prática de decisão é simples: sequenciar a linha fundadora, confirmar a estrutura do locus, verificar a variação do alelo, escolher uma nucleasse compatível com PAM, então combinar a estratégia de reparo com a linha celular.
Esse fluxo de trabalho funciona no nível de espécie, mas a variação da linha fundadora ainda altera o resultado. Em termos simples, os padrões no nível de espécie não se transferem de forma confiável de uma linha fundadora para outra. A validação da linha fundadora é o mínimo necessário [1].
Há outro ponto que as equipes não podem tratar levianamente. A cultura contínua pode introduzir deriva genética ao longo do tempo, o que significa que o plano de edição que funcionou em uma passagem anterior pode não se comportar da mesma forma mais tarde. Por causa disso, as equipes devem incorporar testes genéticos e funcionais regulares no fluxo de trabalho, incluindo sequenciamento de RNA e perfilagem epigenômica, e definir um limite de passagem antes que a função comece a desviar [4].
Principais conclusões para equipes de P&D, produção e aquisição
Para as equipes que estão colocando esse fluxo de trabalho em prática, as prioridades são bastante claras.
- As equipes de P&D& devem sequenciar cedo e projetar a partir da linha do fundador.
- As equipes de produção devem corresponder o design do doador ao viés de reparo da linha celular.
Perguntas Frequentes
Por que o genoma de referência da espécie não é suficiente?
Um genoma de referência da espécie não é suficiente para a edição de genes de carne cultivada. Ele fornece um mapa geral, mas não a biologia real da linha celular com a qual você está trabalhando.
Essa lacuna é importante. Em espécies agrícolas, elementos regulatórios chave, como promotores, intensificadores e regiões não traduzidas, ainda são frequentemente mal caracterizados. Portanto, mesmo que um genoma de referência pareça completo no papel, ele pode não indicar como um determinado locus se comporta em suas células.
Também deixa de fora diferenças específicas da linha celular que afetam diretamente os resultados da edição, incluindo ploidia, padrões de alelos e viés de via de reparo.Sem essa informação, os pesquisadores não podem prever de forma confiável os resultados da edição ou ajustar características como crescimento em suspensão e proliferação eficiente.
Como posso saber se todos os alelos foram realmente editados?
Para confirmar que todos os alelos foram editados em suas linhas celulares de carne cultivada, realize monitoramento genético em intervalos regulares. O sequenciamento do genoma completo oferece uma visão ampla das mudanças de sequência em cada locus, o que ajuda a verificar se a edição ocorreu onde você esperava e se algo mais mudou ao longo do caminho.
O sequenciamento do exoma pode então ajudar a determinar a zigosidade, mostrando se a edição é homozigótica ou heterozigótica.
Quando devo escolher um knockout em vez de um knock-in?
Escolha um knockout quando seu principal objetivo for desligar um gene e melhorar uma característica celular. No cultivo de carne, as equipes frequentemente usam isso para apoiar um crescimento mais rápido, imortalização ou menores necessidades de insumos, alterando o metabolismo celular.
Escolha um knock-in quando precisar adicionar novas informações genéticas ou aumentar a expressão de uma proteína útil. Simplificando, a escolha se resume a isto: você está removendo uma barreira ou adicionando uma nova função?


