

Jos suunnittelen lajiviitteestä perustajalinjan sijaan, voin ohittaa kohteen ennen kuin edes tilaan oppaita.
Bioprosessien insinööreille, soluviljelytieteilijöille ja viljellyn lihan T&&K-tiimeille, ydinpointti on yksinkertainen: muokkauksen onnistuminen riippuu täsmällisestä solulinjasta edessäni, ei etiketissä olevasta lajinimestä. Tässä artikkelissa kavennan päätöspolkua kuuteen tarkistukseen: genomin kokoamisen laatu, ploidia, alleelivariaatio, PAM-pääsy, korjausvinouma ja luovuttajan suunnittelu. Tämä on tärkeää molemmille muokkausluokille: knockouteissa voidaan sietää enemmän korjausvaihtelua, kun taas knock-ineissä riippuu paljon enemmän lokussekvenssistä ja luovuttajan vastaavuudesta.
Muutama käytännön seikka erottuu heti:
- Sekvensoi ensin perustajalinja, suunnittele sitten oppaat siitä sekvenssistä.
- Laske kaikki alleelit lokuksessa ennen kuin kutsut knockoutin valmiiksi.
- Tarkista PAM-pääsy jokaisella alleelilla, eikä vain referenssigenomissa.
- Odotettavissa on lajikohtaisia eroja korjauksessa, kun NHEJ usein hallitsee naudan ja sian somaattisissa linjoissa.
- Sovita luovuttajamallit perustajagenotyyppeihin knock-in-muutoksia varten.
- Uudelleensekvensoi passaged-linjat jos ajautuminen voisi vaikuttaa oppaan sitoutumiseen tai muokkauksen tulokseen.
Yksi artikkelin tulos antaa tälle prosessille välittömän merkityksen: NF2 knockoutin raportoitiin vähentävän kaksinkertaistumisaikaa 5%–100% sian ja naudan myoblasteissa ja ADSC:issä, samalla kun se tukee suspensioadaptaatiota. Mutta tällainen tulos ei tarkoita , että yksi CRISPR -suunnitelma toimisi sellaisenaan naudoissa, sioissa, linnuissa ja kaloissa ilman uudelleentyöstöä.
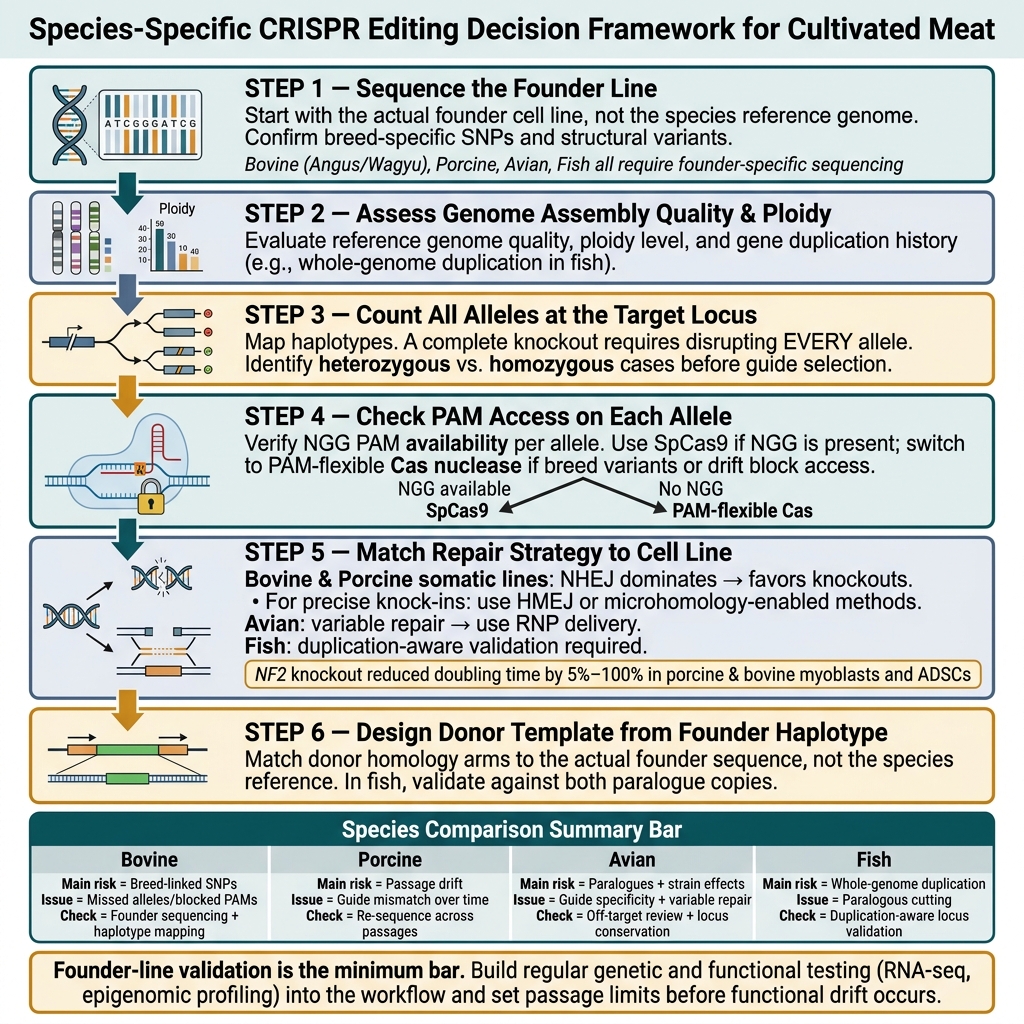
Lajikohtainen CRISPR-muokkaustyönkulku viljellylle lihalle
Nopea vertailu
| Laji | Pääasiallinen suunnitteluriski | Pääasiallinen muokkausongelma | Mitä tarkistaisin ensin |
|---|---|---|---|
| Naudanliha | Rotuun liittyvät SNP:t ja rakenteelliset variantit | Ohitetut alleelit ja estyneet PAM:t | Kantajalinjan sekvensointi ja haplotyyppikartoitus |
| Sianliha | Drifti passagien välillä | Oppaan epäsuhta ajan myötä | Uudelleensekvensointi passagien välillä |
| Linnut | Paralogit ja kantaefektit | Oppaan spesifisyys ja vaihteleva korjaus | Lokuskonservaatio ja off-target-katsaus |
| Kalat | Koko genomin kahdentuminen | Paraloginen leikkaus ja vaikeasti luettavat tulokset | Kahdentumiseen perustuva lokuksen validointi |
Joten, jos haluan selkeän muokkaussuunnitelman viljellyille lihasoluille, aloitan kantajagenomista, varmistan alleelirakenteen, valitsen nukleaasin, joka voi saavuttaa kohteen, ja päätän vasta sitten, onko solulinja paremmin soveltuva knockoutiin vai tarkkaan insertointiin.
sbb-itb-ffee270
Viitegenomit, ploidia ja geenien kahdentuminen asettavat lähtörajoitukset
Aloita kantajalinjan sekvenssillä, ei lajin viitegenomilla. Se kuulostaa pieneltä erolta, mutta käytännössä se muuttaa koko muokkaussuunnitelman.
Alleelien määrä ja paikallinen sekvenssivaihtelu kertovat, onko knockout ylipäätään muokattavissa. Laske alleelit ennen oppaiden valintaa: toiminnallinen knockout tarkoittaa jokaisen alleelin häiritsemistä kohdelokuksessa, joten sinun on erotettava heterotsygoottiset ja homotsygoottiset tapaukset ennen oppaiden valintaa [1]. Tämä vaihe pienentää oppaiden hakutilaa ennen kuin edes pääset PAM:n saatavuuteen.
Naudan ja sian genomit: heterotsygotia, pangenomit ja rotuun liittyvä rakenteellinen vaihtelu
Naudoilla rotuun liittyvä vaihtelu on vakava rajoitus.Angus- ja Wagyu-linjat voivat sisältää erilaisia SNP-malleja ja rakenteellisia variantteja, joten yhden lajin referenssigenomi saattaa jättää huomiotta sekvenssin, joka on todellisuudessa läsnä perustajapoolissa. Ivy Farm Technologies käsitteli tämän sekvensoimalla perustajalinjan ja vahvistamalla muokkauksen Angus- ja Wagyu-pooleissa [1].
Sikalinjoille, turvallisin reitti on sekvensoida perustajalinja suoraan ja sitten sekvensoida se uudelleen eri vaiheissa. Linjakohtainen vaihtelu ja kulttuurin ajautuminen voivat molemmat häiritä oppaan suunnittelua ja tehdä myöhemmästä muokkauksen vahvistamisesta sekavaa [1] [4].
Kun perustajan sekvenssi on vahvistettu, seuraava tarkistus on yksinkertainen: onko kohdesivustolla käytettävissä oleva PAM?
Lintujen ja kalojen genomit: paralogit, valikoivat pyyhkäisyt ja koko genomin kahdentuminen
Lintulajeissa kantaankytketyt valikoivat pyyhkäisyt voivat poistaa sekvenssien monimuotoisuuden kohdelokuksista. Lisäksi vanhemmista kahdentumistapahtumista perityt paralogikopiot tarkoittavat, että oppaan spesifisyys on tarkistettava ennen suunnittelun etenemistä.
Kalojen kohdalla on vielä yksi kerros. Koko genomin kahdentuminen on jättänyt säilyneitä geenikopioita moniin genomeihin, joten oppaan, joka on suunnattu yhteen kopioon, voi myös leikata muita lokuksia, ellei kohteen ulkopuolista seulontaa oteta huomioon kahdentumishistoriaa.
Milloin perustajasolulinja tulisi sekvensoida uudelleen ennen oppaiden suunnittelua
Uudelleensekvensointi on tarpeen, kun lähtömateriaali on heterogeeninen tai kun linja on ollut jatkuvassa viljelyssä.Koko-genomin tai eksomin sekvensointi antaa selkeimmän näkymän, ja luovuttajan homologiset varret on sovitettava todelliseen perustajasekvenssiin ennen kuin mitään knock-in-ohjelmaa [2] [4].
| Laji | Ensisijainen genominen haaste | Suositeltu sekvensointitoimenpide |
|---|---|---|
| Naudanliha (Angus/Wagyu) | Rotukohtaiset SNP:t ja rakenteelliset variantit | Kohdennettu sekvensointi tai perustajalinjan WGS gRNA-yhteensopivuuden varmistamiseksi [1] |
| Sian myoblastit | Korkea SNP-tiheys ja nopea kaksinkertaistumishäiriö | Uudelleensekvensointi passagien yli NGS:llä [1] [4] |
| Kalat / merilajit | Koko genomin kahdentuminen ja säilyneet kaksoiskopiot | De novo -koonti tai syvä uudelleensekvensointi perustajalinjasta [2] |
Kun perustajasekvenssi on lukittu, alleelivariaatio ja PAM:n saatavuus määrittävät, mikä on kohdennettavissa.Yksinkertaisesti sanottuna, alleelispesifiset epäsopivuudet ja PAM-taajuus määrittävät, mihin lokuksiin voidaan ylipäätään tehdä leikkauksia.
Alleelivariaatio ja PAM:n saatavuus määrittävät, mitkä muokkaukset ovat realistisesti kohdennettavissa
Kun perustajasekvenssi on kiinnitetty, seuraava kysymys on yksinkertainen: voidaanko jokaista alleelia edelleen muokata kyseisessä kohdassa, ja onko käytettävissä PAM?Käytännössä opasmuotoilu perustuu kahteen tarkistukseen: haplotyyppien säilymiseen ja PAM:n saatavuuteen.
Alleelispesifisen leikkauksen välttäminen naudoissa, sioissa, kanoissa ja kaloissa
Polymorfismi missä tahansa 20-nukleotidisen protospacerin kohdassa tai suoraan PAM:ssa voi estää yhden alleelin leikkaamisen. Tämä voi jättää sinulle sekasolupoolin, jossa osittainen leikkaus näyttää huonolta muokkaustehokkuudelta, kun todellinen ongelma on alleelin häviäminen leikkauksen aikana.
Korjaus on yksinkertainen.Järjestä kohdealue perustajalinjassa, kartoita haplotyypit ja lukitse oppaat vain alueille, jotka ovat täysin säilyneet kaikissa tunnistetuissa alleeleissa. Tarkista sitten lokus uudelleen laajennetun passagingin jälkeen.
Jos alue ei ole säilynyt haplotyyppien välillä, PAM-valinnalla ei ole merkitystä.
Kun SpCas9 riittää ja milloin tarvitaan PAM-joustavia nukleaaseja
Jos NGG PAM on läsnä, SpCas9 on oletusvalinta. Jos se puuttuu, joko suunnittelet kohteen uudelleen tai siirryt PAM-joustavaan Cas-nukleaasiin. Tämä päätös tulisi tehdä perustajasekvenssin, ei referenssigenomin perusteella.
Lajien vertailu: kohdistettavuus ja nukleaasisopivuus yhdellä silmäyksellä
| Laji | Yleiset solutyypit muokkaukseen | Kohdistettavuuden rajoitus | Paras nukleaasisopivuus |
|---|---|---|---|
| Naudan eläin | Myoblastit, ADSC:t, iPSC:t | Rotuun liittyvät SNP:t (e.g. , Angus vs.Wagyu) [1] | SpCas9, jossa NGG on saatavilla; PAM-joustava Cas, jossa rodun variantit estävät pääsyn |
| Sika | Myoblastit, Fibroblastit | Nopea kulttuurinen ajautuminen passagien aikana [1] | SpCas9; vaihda PAM-joustavaan Cas:iin, jos ajautuminen muuttaa PAM-paikkaa |
| Lintu | Satelliittisolut, Alkion kantasolut | Geneettinen ajautuminen jatkuvassa viljelyssä [4] | PAM-joustava Cas on suositeltava, kun paralogien päällekkäisyys rajoittaa SpCas9:n spesifisyyttä |
| Kala | Myoblastit (Taimen, Karppi, Makrilli) | Koko genomin kahdentuminen ja paralogit [3] | PAM-joustava Cas kahdentuneiden lokusten navigointiin |
Kun kohde on saavutettavissa, korjausvinouma määrää, tuleeko muokkauksesta knockout vai knock-in.
Korjausreitin puolueellisuus ja luovuttajan suunnittelu ohjaavat knockout- ja knock-in-tuloksia
Opas voi leikata siististi ja silti epäonnistua tavoitteessa, jos solu korjaa katkoksen väärällä tavalla. Tämä korjauspuolueellisuus usein ratkaisee, päädytkö knockoutiin, sekalaiseen indel-profiiliin vai tarkkaan knock-iniin. Viljellyn lihan työssä, jossa somaattiset linjat, kuten myoblastit ja rasvaperäiset kantasolut (ADSC:t), ovat päivittäistä materiaalia, tämä puolueellisuus voi ratkaista, eteneekö muokkausohjelma vai pysähtyykö se.
NHEJ, HDR ja HMEJ puolueellisuus nisäkkäiden, lintujen ja kalojen solulinjoissa
Leikkauksen jälkeen pääkysymys on, mikä korjausreitti hallitsee tuotantosolulinjassa. Naudan ja sian somaattisissa linjoissa Non-Homologous End Joining (NHEJ) on yleensä pääreitti.Se tekee yksinkertaisista knockout-muutoksista helpommin saavutettavia kuin tarkat insertoinnit, erityisesti kun tavoitteena on häiritä geeniä vähentääkseen kaksinkertaistumisaikaa tai auttaakseen suspensioadaptaatiota. Ivy Farm Technologies osoitti tämän suoraan: CRISPR/Cas9 knockout-muutokset endogeenisessa NF2-geenissä sian ja naudan myoblasteissa ja ADSC:issä vähensivät kaksinkertaistumisaikoja ja tukivat suspensioadaptaatiota, mikä on kriittinen askel viljellyn lihan skaalaamisessa [1].
Homology-Directed Repair (HDR) voi toimia näissä linjoissa, mutta tehokkuus on usein alhainen, ellei järjestelmää säädetä huolellisesti. Kun tarvitset tarkan insertoinnin, Homology-Mediated End Joining (HMEJ) tai muut mikrohomologialla mahdollistetut menetelmät voivat antaa parempia integraatioprosentteja. Tärkein asia on yksinkertainen: testaa korjauskäyttäytyminen varsinaisessa tuotantosolutyypissä. Passagointi ja suspensioadaptaatio voivat muuttaa editointituloksia ajan myötä [1][4].
Lintujen solut voivat muokata hyvin, mutta korjaustulokset voivat vaihdella enemmän kerrasta toiseen. Kalalinjat muokkaavat myös usein hyvin, mutta kopiointitietoinen validointi on tärkeää, koska paralogit voivat piilottaa todellisen muokkauksen [3].
Lahjoittajamallin suunnittelu lajin mukaan: muoto ja alleelin vastaavuus
Knock-in-muokkauksissa lahjoittajan suunnittelun tulisi seurata korjausreittiä, ei pelkästään viitegenomia. Sovita lahjoittaja perustajan haplotyyppiin eikä lajin viitteeseen. Heterotsygoottisissa nauta- ja sikalinjoissa pelkästään viitesequenssistä rakennettu lahjoittaja voi ohittaa yhden alleelin [1].
Kaloissa kopiointitietoinen suunnittelu on välttämätöntä, koska paralogit voivat monimutkaistaa muokkauksen lukemista. Tarkista sekä opas että lahjoittaja tarkalleen siltä lokukselta, jota haluat muuttaa, sen sijaan että olettaisit yhden viitesequenssin kertovan koko tarinan.
Korjausharha ja knock-in-suunnittelu lajeittain: vertailutaulukko
Alla oleva taulukko muuttaa nämä korjauserot lajitason suunnitteluratkaisuiksi.
| Laji | Hallitseva korjaustendenssi | Päähaaste tarkalle insertoinnille | Suositeltu luovuttaja tai korjausstrategia | Avaimen optimointivipu |
|---|---|---|---|---|
| Nauta | NHEJ | Alhainen HDR-tehokkuus somaattisissa myoblasteissa ja ADSC:issä | dsDNA tai ssODN; HMEJ tarkalle insertoinnille | Perustajan haplotyyppien vastaavuus |
| Sika | NHEJ | Alleelispesifinen vastaavuus; rajoitettu in vitro -elinikä | Alleelivastaava luovuttaja tai knockout, riippuen muokkauksen tavoitteesta | Alleelivastaava luovuttajasuunnittelu |
| Lintu | Mekanismiriippuvainen | Vaihtelevat korjaustulokset | RNP-toimitus hallitulle korjaukselle | RNP-toimitus tiukemman ajoituksen hallintaan |
| Kala | Tehokas muokkaus, reittivaihtelu | Koko genomin kahdentuminen; paralogien häiriö | Kahdentumiseen perustuva opas ja luovuttajasuunnittelu | Vahvista molemmat paralogikopiot |
Päätelmä: päätöksentekokehys laji-spesifiselle CRISPR-muokkaukselle viljellyssä lihassa
Käytännön päätössääntö on yksinkertainen: sekvensoi perustajalinja, vahvista lokuksen rakenne, tarkista alleelivariaatio, valitse PAM-yhteensopiva nukleaasi, sitten sovita korjausstrategia solulinjaan.
Tämä työnkulku toimii lajitasolla, mutta perustajalinjan vaihtelu voi silti muuttaa tulosta. Yksinkertaisesti sanottuna, lajitasoiset oletukset eivät luotettavasti siirry yhdestä perustajalinjasta toiseen. Perustajalinjan validointi on vähimmäisvaatimus [1].
On toinenkin seikka, jota tiimit eivät voi käsitellä kevyesti. Jatkuva viljely voi ajan myötä aiheuttaa geneettistä ajautumista, mikä tarkoittaa, että muokkaussuunnitelma, joka toimi aiemmassa vaiheessa, ei välttämättä käyttäydy samalla tavalla myöhemmin. Tämän vuoksi tiimien tulisi sisällyttää säännöllinen geneettinen ja toiminnallinen testaus työnkulkuun, mukaan lukien RNA-sekvensointi ja epigenominen profilointi, ja asettaa vaiheiden raja ennen kuin toiminta alkaa ajautua [4].
Tärkeimmät opit R&D-, tuotanto- ja hankintatiimeille
Tiimeille, jotka ottavat tämän työnkulun käyttöön, prioriteetit ovat melko selvät.
- T&uotekehitystiimien tulisi ajoittaa aikaisin ja suunnitella perustajan linjasta.
- Tuotantotiimien tulisi sovittaa luovuttajan suunnittelu solulinjan korjausvinoumaan.
Usein kysytyt kysymykset
Miksi lajin referenssigenomi ei riitä?
Lajin referenssigenomi ei riitä viljellyn lihan geenieditointiin. Se antaa sinulle yleiskartan, mutta ei solulinjan todellista biologiaa, jonka kanssa työskentelet.
Tämä aukko on merkittävä. Maatalouslajeissa keskeiset säätelyelementit, kuten promoottorit, tehostajat ja kääntämättömät alueet, ovat usein huonosti karakterisoituja. Joten vaikka referenssigenomi näyttäisi paperilla täydelliseltä, se ei välttämättä kerro, miten tietty lokus käyttäytyy soluissasi.
Se jättää myös pois solulinjakohtaiset erot, jotka vaikuttavat suoraan editointituloksiin, mukaan lukien ploidia, alleelimallit ja korjausreittien vinouma.Ilman näitä tietoja tutkijat eivät voi luotettavasti ennustaa muokkaustuloksia tai säätää ominaisuuksia, kuten suspensiokasvua ja tehokasta lisääntymistä.
Mistä tiedän, onko jokainen alleeli todella muokattu?
Varmistaaksesi, että jokainen alleeli on muokattu viljellyissä lihassolulinjoissasi, suorita geneettinen seuranta säännöllisin väliajoin. Koko genomin sekvensointi antaa sinulle laajan näkymän sekvenssimuutoksista kussakin lokuksessa, mikä auttaa tarkistamaan, tapahtuiko muokkaus odotetusti ja muuttuiko jokin muu prosessin aikana.
Eksomisekvensointi voi sitten auttaa määrittämään tsygoottisuuden, osoittaen, onko muokkaus homotsygoottinen vai heterotsygoottinen.
Milloin minun pitäisi valita knockout knock-inin sijaan?
Valitse knockout, kun päätavoitteesi on sammuttaa geeni ja parantaa solun ominaisuutta. Viljellyssä lihassa tiimit käyttävät tätä usein tukemaan nopeampaa kasvua, kuolemattomuutta tai pienempiä syöttötarpeita muuttamalla solujen aineenvaihduntaa.
Valitse knock-in, kun sinun täytyy lisätä uutta geneettistä tietoa tai tehostaa hyödyllisen proteiinin ilmentymistä. Yksinkertaisesti sanottuna valinta riippuu tästä: poistatko esteen vai lisäätkö uuden toiminnon?


