

Om jag designar från artreferensen istället för grundlinjen kan jag missa målet innan jag ens beställer guider.
För bioprocessingenjörer, cellkulturforskare och odlade kött R&D-team är kärnpunkten enkel: redigeringsframgång beror på den exakta cellinjen framför mig, inte artnamnet på etiketten. I denna artikel begränsar jag beslutsvägen till sex kontroller: genommonteringskvalitet, ploidy, allelvariation, PAM-tillgång, reparationsbias och donordesign. Det är viktigt för båda redigeringsklasserna: knockouts kan tolerera mer reparationsvariabilitet, medan knock-ins är mycket mer beroende av lokussekvens och donormatchning.
Några praktiska punkter framträder direkt:
- Sekvensera grundlinjen först, designa sedan guider från den sekvensen.
- Räkna alla alleler vid lokuset innan du kallar en knockout komplett.
- Kontrollera PAM-åtkomst på varje allel, inte bara på referensgenomet.
- Förvänta dig artsskillnader i reparation, med NHEJ som ofta dominerar i bovina och porcina somatiska linjer.
- Anpassa donormallar till grundarhaplotyper för knock-ins.
- Omsekvensera passagerade linjer om drift kan påverka guidebindning eller redigeringsresultat.
Ett resultat i artikeln ger denna omedelbara processrelevans: NF2 knockout rapporterades minska fördubblingstiden med 5%–100% i porcina och bovina myoblaster och ADSCs, samtidigt som det stödjer anpassning till suspension. Men ett sådant resultat innebär inte att en CRISPR -plan kan överföras mellan nötkreatur, grisar, fåglar och fiskar utan omarbetning.
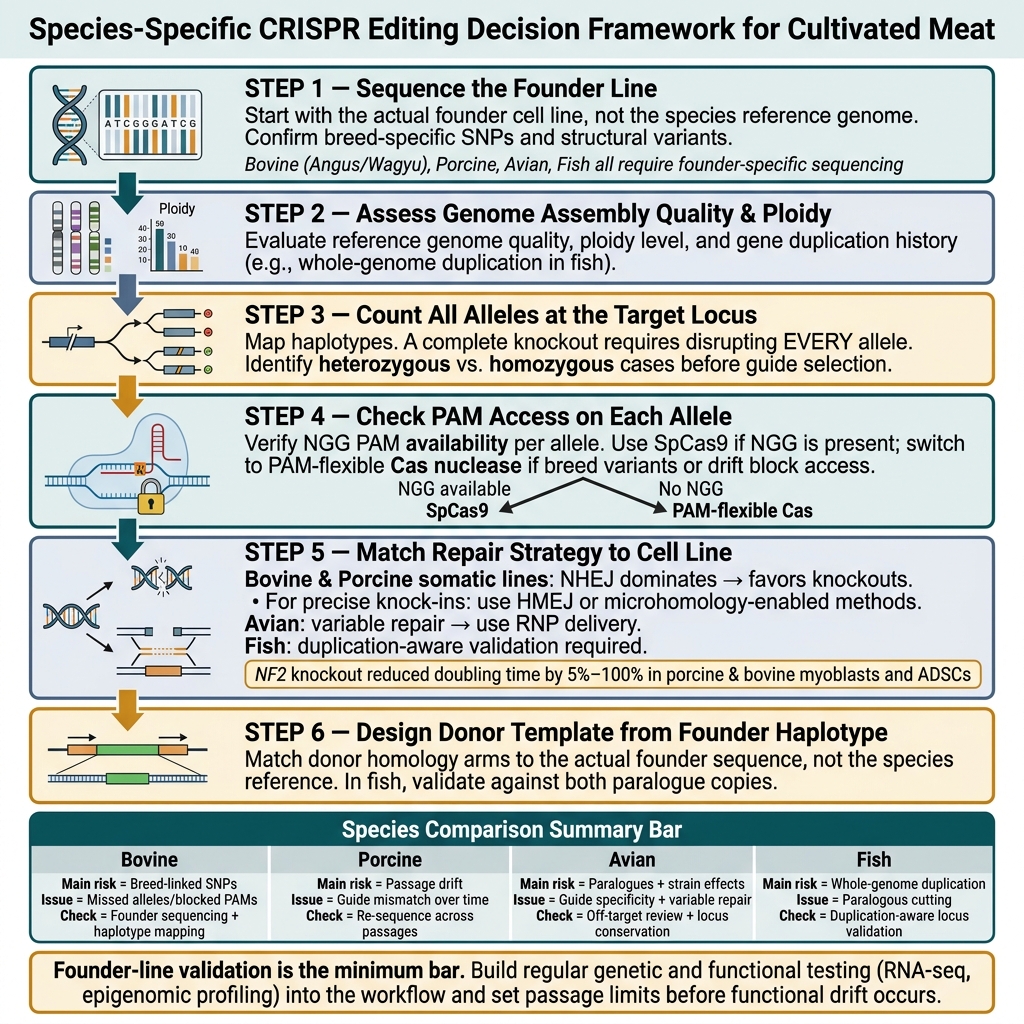
Artsspecifik CRISPR-redigeringsarbetsflöde för odlat kött
Snabb jämförelse
| Art | Huvudsaklig designrisk | Huvudsakligt redigeringsproblem | Vad jag skulle kontrollera först |
|---|---|---|---|
| Boskap | Rasbundna SNPs och strukturella varianter | Missade alleler och blockerade PAMs | Grundlinjesekvensering och haplotypkartering |
| Gris | Drift över passager | Guide-mismatch över tid | Omarbetning över passager |
| Fågel | Paraloger och stam-effekter | Guide-specifik och variabel reparation | Lokuskonservering och off-target granskning |
| Fisk | Helgenomduplicering | Paraloga klipp och svårlästa resultat | Dupliceringsmedveten lokusvalidering |
Så, om jag vill ha en ren redigeringsplan för odlade köttceller, börjar jag med grundgenomet, verifierar allelstrukturen, väljer en nukleas som kan nå platsen, och först då bestämmer jag om cellinjen är bättre lämpad för en knockout eller en precis insättning.
sbb-itb-ffee270
Referensgenom, ploidy och genduplikation sätter startbegränsningarna
Börja med grundlinjens sekvens, inte artens referens. Det låter som en liten skillnad, men i praktiken ändrar det hela redigeringsplanen.
Allelantal och lokal sekvensvariation talar om för dig om en knockout är redigerbar från början. Räkna allelerna innan du väljer guider: en funktionell knockout innebär att störa varje allel vid målplatsen, så du behöver separera heterozygota från homozygota fall innan guideval [1]. Det steget minskar guide-sökområdet innan du ens kommer till PAM-tillgänglighet.
Bovint och svin-genom: heterozygositet, pangenom och rasbundna strukturella variationer
Hos nötkreatur är rasbunden variation en allvarlig begränsning.Angus- och Wagyu-linjer kan ha olika SNP-mönster och strukturella varianter, så en arts referensgenom kan missa sekvensen som faktiskt finns i grundarpoolen. Ivy Farm Technologies hanterade detta genom att sekvensera grundarlinjen och bekräfta redigeringen i Angus- och Wagyu-poolerna [1].
För porcina linjer, är den säkraste vägen att sekvensera grundarlinjen direkt, och sedan sekvensera om den över passager. Linjespecifik variation och drift i kultur kan båda störa guideutformningen och göra senare redigeringsverifiering rörig [1] [4].
När grundarsekvensen är bekräftad, är nästa kontroll enkel: har målsidan en användbar PAM?
Fågel- och fiskgenom: paraloger, selektiva svep och helgenomsduplikation
Hos fågelarter kan stamkopplade selektiva svep ta bort sekvensdiversitet vid målloci. Dessutom innebär paralogkopior som ärvts från äldre duplikationer att guidespecificitet måste kontrolleras innan designen går vidare.
Fiskar lägger till ett annat lager. Helgenomsduplikation har lämnat kvarvarande dubblettgenkopior över många genom, så en guide riktad mot en kopia kan också klippa andra loci om inte off-target screening tar hänsyn till den duplikationshistoriken.
När man ska resequencera grundarcellsinjen innan man designar guider
Resequencering behövs när utgångsmaterialet är heterogent eller när linjen har spenderat tid i kontinuerlig kultur.Helgenom- eller exomsekvensering ger den tydligaste bilden, och donatorhomologiarmer måste matcha den faktiska grundarsekvensen innan något knock-in-program [2] [4].
| Art | Primär genomisk utmaning | Rekommenderad sekvenseringsåtgärd |
|---|---|---|
| Boskap (Angus/Wagyu) | Rasspecifika SNPs och strukturella varianter | Riktad sekvensering eller WGS av grundlinjen för att bekräfta gRNA-matchning [1] |
| Porcina myoblaster | Hög SNP-täthet och snabb fördubblingsdrift | Återsekvensera över passager med NGS [1] [4] |
| Fisk / marina arter | Helgenomsduplikation och bibehållna dubblettkopior | De novo-sammanställning eller djup återsekvensering av grundlinjen [2] |
När grundsekvensen är fastställd, bestämmer allelvariation och PAM-tillgänglighet vad som är målinriktat.I enkla termer bestämmer allel-specifika mismatchar och PAM-frekvens vilka loci som överhuvudtaget kan klippas.
Allelvariation och PAM-tillgänglighet avgör vilka redigeringar som realistiskt kan riktas in på
När grundsekvensen är fastställd är nästa fråga enkel: kan varje allel fortfarande redigeras på den platsen, och finns det en användbar PAM? I praktiken handlar guide-design om två kontroller: haplotypkonservering och PAM-tillgång.
Undvika allel-specifik klippning i nötkreatur, grisar, kycklingar och fisk
En polymorfism var som helst i den 20-nukleotid långa protospacern, eller precis vid PAM, kan hindra en allel från att klippas. Det kan lämna dig med en blandad cellpool där delvis klippning ser ut som dålig redigeringseffektivitet, när det verkliga problemet är allel-bortfall under klippning.
Lösningen är enkel. Sekvensera mål-lokus i grundlinjen, kartlägg haplotyperna och lås endast guider i regioner som är fullt bevarade över alla identifierade alleler. Kontrollera sedan lokuset igen efter förlängd passering.
Om platsen inte är bevarad över haplotyper, spelar PAM-valet ingen roll.
När SpCas9 är tillräcklig och när PAM-flexibla nukleaser behövs
Om en NGG PAM finns, är SpCas9 standardvalet. Om den saknas, måste du antingen omdesigna målet eller gå över till en PAM-flexibel Cas-nukleas. Det beslutet bör komma från grundsekvensen, inte referensgenomet.
Jämförelse av arter: målinriktning och nukleaspassning i korthet
| Arter | Vanliga celltyper för redigering | Målinriktningsbegränsning | Bästa nukleaspassning |
|---|---|---|---|
| Boskap | Myoblaster, ADSCs, iPSCs | Rasbundna SNPs (e.g. , Angus vs.Wagyu) [1] | SpCas9 där NGG är tillgänglig; PAM-flexibel Cas där rasvarianter blockerar åtkomst |
| Porcine | Myoblaster, Fibroblaster | Snabb kulturdrift över passager [1] | SpCas9; byt till PAM-flexibel Cas om drift förändrar PAM-platsen |
| Avian | Satellitceller, Embryonala stamceller | Genetisk drift i kontinuerlig kultur [4] | PAM-flexibel Cas föredras där paralog överlappning begränsar SpCas9 specificitet |
| Fisk | Myoblaster (Forell, Karp, Makrill) | Helgenomsduplikation och paraloger [3] | PAM-flexibel Cas för att navigera duplicerade loci |
När en plats är målbar, avgör reparationsbias om redigeringen blir en knockout eller en knock-in.
Reparationsväg bias och donordesign påverkar knockout och knock-in resultat
En guide kan klippa rent och ändå missa målet om cellen reparerar brottet på fel sätt. Denna reparationsbias avgör ofta om du slutar med en knockout, en blandad indelprofil eller en exakt knock-in. Inom odlat köttarbete, där somatiska linjer som myoblaster och adiposderiverade stamceller (ADSCs) är det dagliga materialet, kan den biasen avgöra om ett redigeringsprogram går framåt eller stannar.
NHEJ, HDR och HMEJ bias över däggdjurs-, fågel- och fiskcellinjer
Efter klyvning är huvudfrågan vilken reparationsväg som dominerar i produktionscellinjen. I bovina och porcina somatiska linjer är Non-Homologous End Joining (NHEJ) vanligtvis huvudvägen.Det gör enkla knockouts mer uppnåeliga än precisa insättningar, särskilt när målet är att störa en gen för att minska fördubblingstiden eller hjälpa till med suspension anpassning. Ivy Farm Technologies visade detta direkt: CRISPR/Cas9 knockouts av den endogena NF2 genen i porcina och bovina myoblaster och ADSCs minskade fördubblingstider och stödde suspension anpassning, ett kritiskt steg för skalning av odlat kött [1].
Homology-Directed Repair (HDR) kan fungera i dessa linjer, men effektiviteten är ofta låg om inte systemet är noggrant justerat. När du behöver en precis insättning kan Homology-Mediated End Joining (HMEJ) eller andra mikrohomologi-aktiverade metoder ge bättre integrationsfrekvenser. Huvudpoängen är enkel: testa reparationsbeteende i den faktiska produktionscelltypen. Passage och suspension anpassning kan förändra redigeringsresultat över tid [1][4].
Fågelceller kan redigera bra, men reparationsresultaten tenderar att variera mer från gång till gång. Fisklinjer redigerar också ofta bra, men validering medveten om duplikation är viktig eftersom paraloger kan dölja den verkliga redigeringen [3].
Donormallens design efter art: format och allelmatchning
För knock-ins bör donordesignen följa reparationsvägen, inte bara referensgenomet. Matcha donorn med grundarhaplotypen snarare än artens referens. I heterozygota bovina och porcina linjer kan en donor byggd endast från referenssekvensen missa en allel [1].
Hos fisk är design medveten om duplikation ett måste eftersom paraloger kan komplicera avläsningen av redigeringen. Kontrollera både guide och donor mot den exakta plats du vill ändra istället för att anta att en referenssekvens berättar hela historien.
Reparationsbias och knock-in-design efter art: jämförelsetabell
Tabellen nedan omvandlar dessa reparationsskillnader till designval på artnivå.
| Art | Dominerande reparationstendens | Huvudutmaning för precis insättning | Föredragen donator eller reparationsstrategi | Nyckeloptimeringsfaktor |
|---|---|---|---|---|
| Bovin | NHEJ | Låg HDR-effektivitet i somatiska myoblaster och ADSCs | dsDNA eller ssODN; HMEJ för precis insättning | Grundarhaplotypmatchning |
| Porcin | NHEJ | Allelspecifik matchning; begränsad livslängd in vitro | Allelmatchad donator eller knockout, beroende på redigeringsmål | Allelmatchad donatordesign |
| Fågel | Mekanismberoende | Variabla reparationsresultat | RNP-leverans för kontrollerad reparation | RNP-leverans för stramare tidskontroll |
| Fisk | Effektiv redigering, väg variabel | Helgenomsduplikation; paraloginterferens | Duplikationsmedveten guide och donatordesign | Validera båda paralogkopiorna |
Slutsats: ett beslutsramverk för artsspecifik CRISPR -redigering i odlat kött
Den praktiska beslutsregeln är enkel: sekvensera grundarlinjen, bekräfta locusstruktur, kontrollera allelvariation, välj en PAM-kompatibel nukleas, matcha sedan reparationsstrategin till cellinjen.
Det arbetsflödet fungerar på artnivå, men variationer i grundarlinjen förändrar fortfarande resultatet. Enkelt uttryckt, standardinställningar på artnivå överförs inte pålitligt från en grundarlinje till en annan. Validering av grundarlinjen är den minsta ribban [1].
Det finns en annan punkt som team inte kan ta lätt på. Kontinuerlig kultur kan introducera genetisk drift över tid, vilket innebär att redigeringsplanen som fungerade vid ett tidigare passage kanske inte beter sig på samma sätt senare. På grund av detta bör team bygga in regelbunden genetisk och funktionell testning i arbetsflödet, inklusive RNA-sekvensering och epigenomisk profilering, och sätta en passagegräns innan funktionen börjar driva [4].
Viktiga insikter för R&D-, produktions- och inköpsteam
För team som implementerar detta arbetsflöde är prioriteringarna ganska tydliga.
- R&D-team bör sekvensera tidigt och designa från grundarlinjen.
- Produktionsteam bör matcha donordesignen med cellinjens reparationsbias.
Vanliga frågor
Varför räcker inte artens referensgenom?
Ett artens referensgenom räcker inte för genredigering av odlat kött. Det ger dig en allmän karta, men inte den faktiska biologin hos cellinjen du arbetar med.
Denna lucka är viktig. Hos jordbruksarter är viktiga regulatoriska element som promotorer, förstärkare och oöversatta regioner fortfarande ofta dåligt karakteriserade. Så även om ett referensgenom ser komplett ut på papper, kanske det inte berättar hur en given locus beter sig i dina celler.
Det utelämnar också cellinjespecifika skillnader som direkt påverkar redigeringsresultaten, inklusive ploidy, allelmönster och reparationsvägsbias.Utan den informationen kan forskare inte pålitligt förutsäga redigeringsresultat eller justera egenskaper som suspensionstillväxt och effektiv proliferation.
Hur vet jag om varje allel faktiskt redigerades?
För att bekräfta att varje allel redigerades i dina odlade köttcellinjer, utför genetisk övervakning med jämna mellanrum. Helgenomsekvensering ger dig en bred översikt över sekvensförändringar över varje locus, vilket hjälper dig att kontrollera om redigering skedde där du förväntade dig och om något annat förändrades under processen.
Exomsekvensering kan sedan hjälpa till att bestämma zygositet, vilket visar om redigeringen är homozygot eller heterozygot.
När ska jag välja en knockout framför en knock-in?
Välj en knockout när ditt huvudmål är att stänga av en gen och förbättra en cellegenskap.Inom odlat kött använder team ofta detta för att stödja snabbare tillväxt, immortalisation eller lägre behov av insatsvaror genom att förändra cellmetabolismen.
Välj en knock-in när du behöver lägga till ny genetisk information eller öka uttrycket av ett användbart protein. Enkelt uttryckt handlar valet om detta: tar du bort ett hinder, eller lägger du till en ny funktion?


