

Hvis jeg designer ud fra artsreferencen i stedet for grundlæggerlinjen, kan jeg ramme ved siden af målet, før jeg overhovedet bestiller guider.
For bioprocesingeniører, cellekulturforskere og dyrket kød R&D-hold er hovedpunktet enkelt: redigeringssucces afhænger af den præcise cellelinje , der er foran mig, ikke artsnavnet på etiketten. I denne artikel indsnævrer jeg beslutningsvejen til seks tjek: genommonteringskvalitet, ploiditet, allelvariation, PAM-adgang, reparationsbias og donor-design. Det er vigtigt for begge redigeringsklasser: knockouts kan tolerere mere reparationsvariabilitet, mens knock-ins afhænger langt mere af locus-sekvens og donormatch.
Nogle få praktiske punkter skiller sig straks ud:
- Sekventér grundlæggerlinjen først, derefter design guider ud fra den sekvens.
- Tæl alle alleler ved locus , før du kalder en knockout komplet.
- Tjek PAM-adgang på hver allel, ikke kun på referencen genomet.
- Forvent artsforskelle i reparation, med NHEJ ofte dominerende i bovine og porcine somatiske linjer.
- Match donor skabeloner til grundlægger haplotyper for knock-ins.
- Re-sekventér passagerede linjer hvis drift kunne påvirke guidebinding eller redigeringsudlæsning.
Et resultat i artiklen giver denne umiddelbare proces relevans: NF2 knockout blev rapporteret at reducere fordoblingstiden med 5%–100% i porcine og bovine myoblaster og ADSCs, samtidig med at det understøtter suspensionstilpasning. Men den slags resultat betyder ikke at en CRISPR plan kan overføres til kvæg, svin, fugle og fisk uden genarbejde.
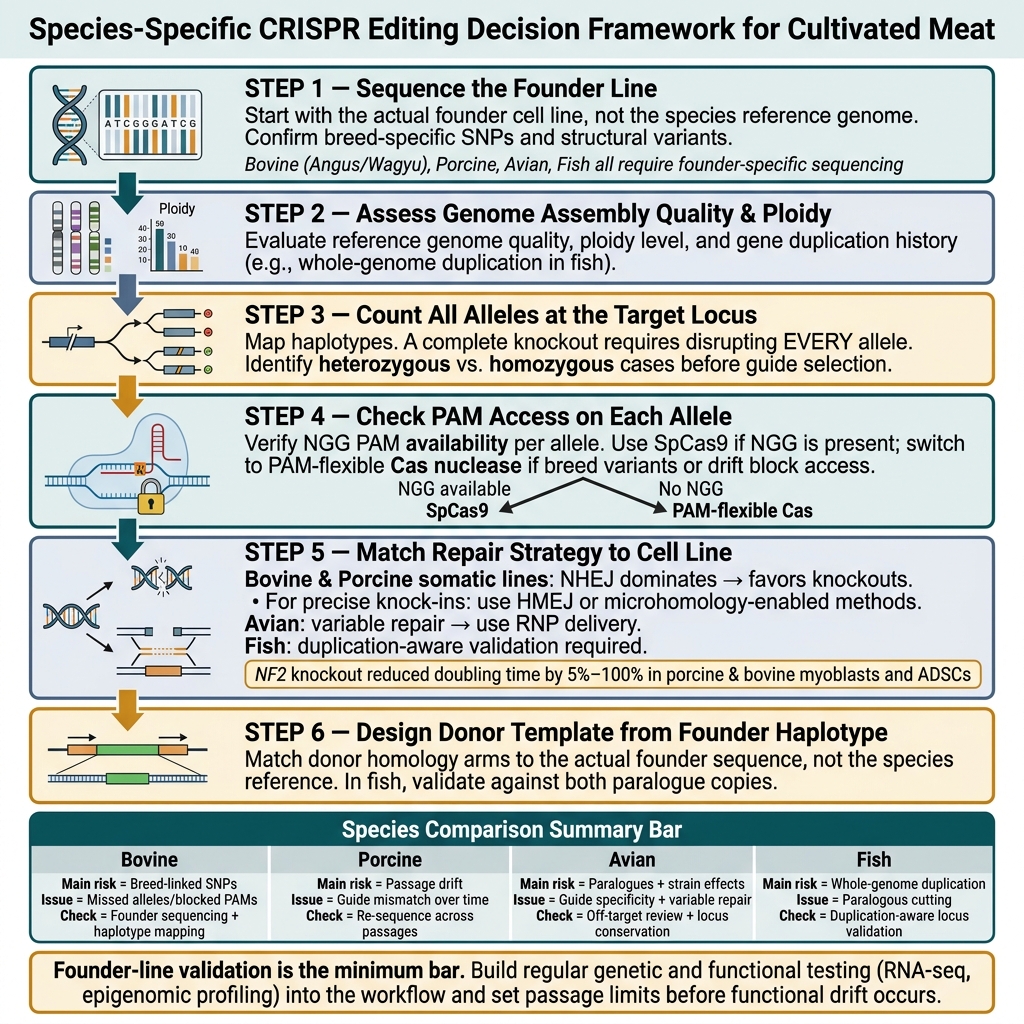
Artspecifik CRISPR-redigeringsarbejdsgang for dyrket kød
Hurtig sammenligning
| Art | Hoveddesignrisiko | Hovedredigeringsproblem | Hvad jeg ville tjekke først |
|---|---|---|---|
| Bovin | Race-relaterede SNP'er og strukturelle varianter | Missede alleler og blokerede PAM'er | Grundlinje-sekventering og haplotypekortlægning |
| Porcin | Drift på tværs af passager | Guide-mismatch over tid | Re-sekventering på tværs af passager |
| Avian | Paraloger og stammeeffekter | Guide-specifikitet og variabel reparation | Lokuskonservering og off-target gennemgang |
| Fisk | Helgenomduplikation | Paraloge skæringer og svære at læse resultater | Duplikationsbevidst lokusvalidering |
Så hvis jeg vil have en ren redigeringsplan for dyrkede kød-celler, starter jeg med grundergenomet, verificerer allelstrukturen, vælger en nuklease, der kan nå stedet, og beslutter først derefter, om cellelinjen er bedre egnet til en knockout eller en præcis indsættelse.
sbb-itb-ffee270
Referencegenomer, ploidy og genduplikation sætter de indledende begrænsninger
Start med grundlæggerlinjens sekvens, ikke artens reference. Det lyder som en lille forskel, men i praksis ændrer det hele redigeringsplanen.
Alleltælling og lokal sekvensvariation fortæller dig, om en knockout overhovedet er redigerbar. Tæl allelerne, før du vælger guider: en funktionel knockout betyder at forstyrre hver allel ved målstedet, så du skal adskille heterozygote fra homozygote tilfælde, før du vælger guider [1]. Det trin reducerer guide-søgerummet før du overhovedet når til PAM-tilgængelighed.
Bovine og porcine genomer: heterozygositet, pangenomer og race-relateret strukturel variation
Hos kvæg er race-relateret variation en alvorlig begrænsning. Angus- og Wagyu-linjer kan have forskellige SNP-mønstre og strukturelle varianter, så et artsreferencegenom kan mangle den sekvens, der faktisk er til stede i grundlæggerpuljen. Ivy Farm Technologies håndterede dette ved at sekvensere grundlæggerlinjen og bekræfte redigeringen i Angus- og Wagyu-puljer [1].
For svinelinjer, er den sikreste vej at sekvensere grundlæggerlinjen direkte og derefter re-sekvensere den på tværs af passager. Linjespecifik variation og drift i kultur kan begge forstyrre guide-design og gøre senere redigeringsverifikation rodet [1] [4].
Når grundlæggersekvensen er bekræftet, er den næste kontrol enkel: har målstedet en brugbar PAM?
Fugle- og fiskegenomer: paraloger, selektive sweeps og helgenomduplikation
I fuglearter kan stammebundne selektive sweeps fjerne sekvensdiversitet ved målloci. Oven i det betyder paralogkopier, der er arvet fra ældre duplikationsbegivenheder, at guidespecificitet skal kontrolleres, før designet går videre.
Fisk tilføjer et andet lag. Helgenomduplikation har efterladt bevarede duplikerede genkopier på tværs af mange genomer, så en guide rettet mod én kopi kan også skære andre loci, medmindre off-target screening tager højde for den duplikationshistorie.
Hvornår skal grundlæggercellelinjen resekventeres, før guider designes
Resekventering er nødvendig, når udgangsmaterialet er heterogent, eller når linjen har tilbragt tid i kontinuerlig kultur.Helgenom- eller exomsekventering giver det klareste billede, og donorhomologiarme skal matche den faktiske grundlæggersekvens før ethvert knock-in-program [2] [4].
| Art | Primær genomisk udfordring | Anbefalet sekventeringshandling |
|---|---|---|
| Bovin (Angus/Wagyu) | Race-specifikke SNP'er og strukturelle varianter | Targeteret sekventering eller WGS af grundlinjen for at bekræfte gRNA-match [1] |
| Porcine myoblaster | Høj SNP-tæthed og hurtig fordoblingsdrift | Re-sekventering på tværs af passager med NGS [1] [4] |
| Fisk / marine arter | Helgenomduplikation og bevarede duplikatkopier | De novo samling eller dyb resekventering af grundlinjen [2] |
Efter grundsekvensen er fastlagt, afgør allelvariation og PAM-tilgængelighed, hvad der er målrettet.På enkle vilkår bestemmer allel-specifikke mismatches og PAM-frekvens, hvilke loci der overhovedet kan skæres.
Allelvariation og PAM-tilgængelighed afgør, hvilke redigeringer der realistisk kan målrettes
Når grundsekvensen er fastlagt, er det næste spørgsmål enkelt: kan hver allel stadig redigeres på det sted, og er der en brugbar PAM? I praksis kommer guide-design ned til to kontrolpunkter: haplotypekonservering og PAM-adgang.
Undgå allel-specifik skæring i kvæg, svin, kyllinger og fisk
En polymorfisme hvor som helst i den 20-nukleotid protospacer, eller lige ved PAM, kan forhindre en allel i at blive skåret. Det kan efterlade dig med en blandet cellepulje, hvor delvis skæring ligner dårlig redigeringseffektivitet, når det egentlige problem er alleludfald under skæring.
Løsningen er ligetil. Sekventér mål-locus i grundlinjen, kortlæg haplotyperne, og lås kun guider i regioner, der er fuldt konserverede på tværs af alle identificerede alleler. Derefter genkontroller locus efter forlænget passering.
Hvis stedet ikke er konserveret på tværs af haplotyper, er PAM-valg ikke vigtigt.
Når SpCas9 er tilstrækkelig, og når PAM-fleksible nukleaser er nødvendige
Hvis en NGG PAM er til stede, er SpCas9 standardvalget. Hvis den er fraværende, skal du enten redesigne målet eller skifte til en PAM-fleksibel Cas nuklease. Den beslutning bør komme fra grundsekvensen, ikke referencegenomet.
Artsammenligning: målbarhed og nukleasepasning ved et øjekast
| Art | Almindelige celletyper til redigering | Målbarhedsbegrænsning | Bedste nukleasepasning |
|---|---|---|---|
| Bovin | Myoblaster, ADSCs, iPSCs | Race-relaterede SNP'er (e.g. , Angus vs. Wagyu) [1] | SpCas9 hvor NGG er tilgængelig; PAM-fleksibel Cas hvor racevarianter blokerer adgang |
| Porcine | Myoblaster, Fibroblaster | Hurtig kulturdrift på tværs af passager [1] | SpCas9; skift til PAM-fleksibel Cas hvis drift ændrer PAM-stedet |
| Avian | Satellitceller, Embryonale Stamceller | Genetisk drift i kontinuerlig kultur [4] | PAM-fleksibel Cas foretrækkes hvor paralog overlap begrænser SpCas9 specificitet |
| Fisk | Myoblaster (Ørred, Karpe, Makrel) | Helgenomduplikation og paraloger [3] | PAM-fleksibel Cas til at navigere i duplikerede loci |
Når et sted er målrettet, bestemmer reparationsbias om redigeringen bliver en knockout eller en knock-in.
Reparationsvej bias og donor design påvirker knockout og knock-in resultater
En guide kan skære rent og stadig misse målet, hvis cellen reparerer bruddet på den forkerte måde. Denne reparationsbias afgør ofte, om du ender med en knockout, en blandet indel-profil eller en præcis knock-in. I arbejdet med dyrket kød, hvor somatiske linjer som myoblaster og fedtstamceller (ADSC'er) er det daglige materiale, kan denne bias afgøre, om et redigeringsprogram skrider fremad eller går i stå.
NHEJ, HDR og HMEJ bias på tværs af pattedyr, fugle og fisk cellelinjer
Efter kløvning er hovedproblemet, hvilken reparationsvej der dominerer i produktionscellelinjen. I bovine og porcine somatiske linjer er Non-Homologous End Joining (NHEJ) normalt hovedruten.Det gør simple knockouts mere opnåelige end præcise indsættelser, især når målet er at forstyrre et gen for at reducere fordoblingstiden eller hjælpe med suspensionstilpasning. Ivy Farm Technologies viste dette direkte: CRISPR/Cas9 knockouts af det endogene NF2 gen i svine- og kvægmyoblaster og ADSCs reducerede fordoblingstider og understøttede suspensionstilpasning, et kritisk skridt for skalering af dyrket kød [1].
Homology-Directed Repair (HDR) kan fungere i disse linjer, men effektiviteten er ofte lav, medmindre systemet er nøje afstemt. Når du har brug for en præcis indsættelse, kan Homology-Mediated End Joining (HMEJ) eller andre mikrohomologi-aktiverede metoder give bedre integrationsrater. Hovedpunktet er enkelt: test reparationsadfærd i den faktiske produktionscelletype. Passage og suspensionstilpasning kan ændre redigeringsresultater over tid [1][4].
Avian celler kan redigere godt, men reparationsresultaterne har tendens til at variere mere fra gang til gang. Fiskelinjer redigerer også ofte godt, men validering med opmærksomhed på duplikation er vigtig, fordi paraloger kan skjule den sande redigering [3].
Donorskabelondesign efter art: format og allelmatchning
For knock-ins bør donordesign følge reparationsvejen, ikke kun referencens genom. Match donoren til grundlæggerens haplotype snarere end artens reference. I heterozygote bovine og porcine linjer kan en donor, der kun er bygget fra referencens sekvens, mangle et allel [1].
I fisk er design med opmærksomhed på duplikation et must, fordi paraloger kan komplicere aflæsningen af redigeringen. Tjek både guide og donor mod det præcise locus, du ønsker at ændre, i stedet for at antage, at en referencesekvens fortæller hele historien.
Reparationsbias og knock-in design efter art: sammenligningstabel
Tabellen nedenfor omsætter disse reparationsforskelle til designvalg på artsniveau.
| Art | Dominerende reparationstendens | Hovedudfordring for præcis indsættelse | Foretrukken donor eller reparationsstrategi | Nøgleoptimeringsparameter |
|---|---|---|---|---|
| Bovin | NHEJ | Lav HDR-effektivitet i somatiske myoblaster og ADSC'er | dsDNA eller ssODN; HMEJ for præcis indsættelse | Grundlægger haplotype matchning |
| Porcin | NHEJ | Allelspecifik matchning; begrænset in vitro levetid | Allel-matchet donor eller knockout, afhængigt af redigeringsmålet | Allel-matchet donordesign |
| Fugle | Mekanisme-afhængig | Variable reparationsresultater | RNP-levering for kontrolleret reparation | RNP-levering for strammere tidskontrol |
| Fisk | Effektiv redigering, variabel vej | Helgenomduplikation; paralog interferens | Duplikationsbevidst guide og donordesign | Validér begge paralogkopier |
Konklusion: en beslutningsramme for arts-specifik CRISPR redigering i dyrket kød
Den praktiske beslutningsregel er ligetil: sekventér grundlæggerlinjen, bekræft locusstruktur, tjek allelvariation, vælg en PAM-kompatibel nuklease, og match derefter reparationsstrategien til cellelinjen.
Denne arbejdsgang fungerer på artsniveau, men variationer i grundlæggerlinjen ændrer stadig resultatet. På almindeligt sprog betyder det, at artsniveau-standarder ikke pålideligt overføres fra en grundlæggerlinje til en anden. Validering af grundlæggerlinjen er minimumskravet [1].
Der er et andet punkt, som teams ikke kan tage let på. Kontinuerlig kultur kan introducere genetisk drift over tid, hvilket betyder, at redigeringsplanen, der fungerede ved en tidligere passage, muligvis ikke opfører sig på samme måde senere. På grund af dette bør teams indbygge regelmæssig genetisk og funktionel testning i arbejdsgangen, herunder RNA-sekventering og epigenomisk profilering, og sætte en passagegrænse, før funktionen begynder at drifte [4].
Vigtige punkter for R&D-, produktions- og indkøbsteams
For teams, der implementerer denne arbejdsgang, er prioriteterne ret klare.
- R&D-hold bør sekvensere tidligt og designe fra grundlæggerlinjen.
- Produktionshold bør matche donorens design med cellelinjens reparationsbias.
Ofte stillede spørgsmål
Hvorfor er artsreferencens genom ikke nok?
Et artsreferencens genom er ikke nok til genredigering af dyrket kød. Det giver dig et generelt kort, men ikke den faktiske biologi af den cellelinje, du arbejder med.
Det hul betyder noget. I landbrugsarter er nøgleregulatoriske elementer som promotorer, forstærkere og uoversatte regioner stadig ofte dårligt karakteriseret. Så selvom et referencens genom ser komplet ud på papiret, fortæller det dig måske ikke, hvordan et givet locus opfører sig i dine celler.
Det udelader også cellelinjespecifikke forskelle, der direkte påvirker redigeringsresultater, herunder ploidy, allelmønstre og reparationsvejens bias.Uden den information kan forskere ikke pålideligt forudsige redigeringsresultater eller justere egenskaber som suspensionstilvækst og effektiv proliferation.
Hvordan ved jeg, om alle alleler faktisk blev redigeret?
For at bekræfte, at alle alleler blev redigeret i dine dyrkede kødcellinjer, skal du udføre genetisk overvågning med jævne mellemrum. Helgenomsekventering giver dig et bredt overblik over sekvensændringer på tværs af hvert locus, hvilket hjælper dig med at kontrollere, om redigeringen fandt sted, hvor du forventede, og om noget andet ændrede sig undervejs.
Exomsekventering kan derefter hjælpe med at bestemme zygositet, hvilket viser, om redigeringen er homozygot eller heterozygot.
Hvornår skal jeg vælge en knockout frem for en knock-in?
Vælg en knockout , når dit hovedmål er at slukke for et gen og forbedre en celleegenskab.Inden for dyrket kød bruger teams ofte dette til at understøtte hurtigere vækst, immortalisation eller lavere inputbehov ved at ændre cellulær metabolisme.
Vælg en knock-in , når du har brug for at tilføje ny genetisk information eller øge udtrykket af et nyttigt protein. Kort sagt, valget afhænger af dette: fjerner du en barriere, eller tilføjer du en ny funktion?


