

Jeśli projektuję na podstawie odniesienia do gatunku zamiast linii założycielskiej, mogę nie trafić w cel, zanim jeszcze zamówię przewodniki.
Dla inżynierów bioprocesów, naukowców zajmujących się hodowlą komórek i zespołów R&D zajmujących się mięsem hodowlanym, kluczowy punkt jest prosty: sukces edycji zależy od dokładnej linii komórkowej przed nami, a nie od nazwy gatunku na etykiecie. W tym artykule zawężam ścieżkę decyzyjną do sześciu kontroli: jakość montażu genomu, ploidalność, zmienność alleli, dostęp do PAM, preferencje naprawcze i projekt dawcy. To ma znaczenie dla obu klas edycji: knockouty mogą tolerować większą zmienność naprawczą, podczas gdy knock-iny znacznie bardziej zależą od sekwencji locus i dopasowania dawcy.
Kilka praktycznych punktów wyróżnia się od razu:
- Najpierw sekwencjonuj linię założycielską, następnie projektuj przewodniki na podstawie tej sekwencji.
- Policz wszystkie allele w locus zanim uznasz knockout za kompletny.
- Sprawdź dostęp PAM na każdym allelu, nie tylko w genomie referencyjnym.
- Oczekuj różnic gatunkowych w naprawie, z NHEJ często dominującym w liniach somatycznych bydła i świń.
- Dopasuj szablony dawców do haplotypów założycieli dla knock-inów.
- Ponownie sekwencjonuj linie pasażowane jeśli dryf mógłby wpłynąć na wiązanie przewodnika lub odczyt edycji.
Jeden wynik w artykule nadaje temu procesowi natychmiastową istotność: Knockout NF2 zgłoszono jako zmniejszający czas podwojenia o 5%–100% w mioblastach i ADSC świń i bydła, jednocześnie wspierając adaptację do zawiesiny. Ale taki wynik nie oznacza, że jeden plan CRISPR przenosi się na bydło, świnie, ptaki i ryby bez przeróbek.
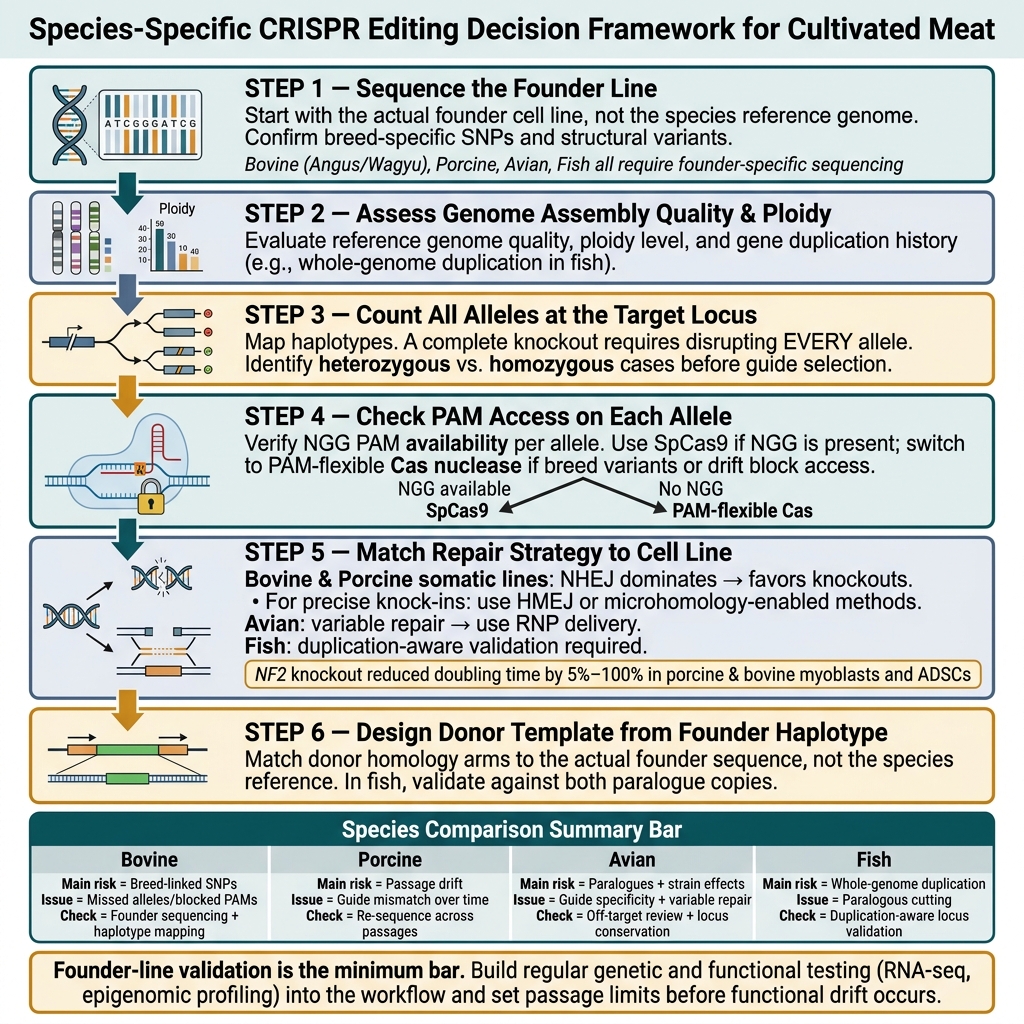
Specyficzny dla gatunku przepływ pracy edycji CRISPR dla mięsa hodowlanego
Szybkie porównanie
| Gatunek | Główne ryzyko projektowe | Główne problemy z edycją | Co sprawdziłbym najpierw |
|---|---|---|---|
| Bydło | SNPs związane z rasą i warianty strukturalne | Pominięte allele i zablokowane PAMy | Sekwencjonowanie linii założycielskiej i mapowanie haplotypów |
| Świnie | Dryf w kolejnych pasażach | Niedopasowanie przewodnika w czasie | Ponowne sekwencjonowanie w kolejnych pasażach |
| Ptaki | Paralogi i efekty szczepów | Specyficzność przewodnika i zmienna naprawa | Konserwacja locus i przegląd poza celem |
| Ryby | Duplikacja całego genomu | Cięcie paralogiczne i trudne do odczytania wyniki | Walidacja locus uwzględniająca duplikację |
Więc, jeśli chcę czystego planu edycji dla komórek mięsa hodowlanego, zaczynam od genomu założycielskiego, weryfikuję strukturę alleli, wybieram nukleazę, która może dotrzeć do miejsca, a dopiero potem decyduję, czy linia komórkowa lepiej nadaje się do nokautu czy precyzyjnej insercji.
sbb-itb-ffee270
Genomy referencyjne, ploidalność i duplikacja genów ustalają początkowe ograniczenia
Zacznij od sekwencji linii założycielskiej, nie od referencji gatunku. To brzmi jak mała różnica, ale w praktyce zmienia cały plan edycji.
Liczba alleli i lokalna zmienność sekwencji mówią ci, czy knockout jest w ogóle edytowalny. Policz allele zanim wybierzesz przewodniki: funkcjonalny knockout oznacza zakłócenie każdego allelu w docelowym locus, więc musisz oddzielić przypadki heterozygotyczne od homozygotycznych przed wyborem przewodników [1]. Ten krok zmniejsza przestrzeń wyszukiwania przewodników zanim jeszcze dotrzesz do dostępności PAM.
Genomy bydła i świń: heterozygotyczność, pangenomy i zmienność strukturalna związana z rasą
U bydła, zmienność związana z rasą jest poważnym ograniczeniem.Linie Angus i Wagyu mogą mieć różne wzorce SNP i warianty strukturalne, więc jeden genom referencyjny gatunku może pominąć sekwencję, która faktycznie występuje w puli założycielskiej. Ivy Farm Technologies poradziło sobie z tym, sekwencjonując linię założycielską i potwierdzając edycję w pulach Angus i Wagyu [1].
Dla linii świńskich, najbezpieczniejszą drogą jest bezpośrednie sekwencjonowanie linii założycielskiej, a następnie ponowne sekwencjonowanie jej w kolejnych pasażach. Zmienność specyficzna dla linii i dryf w kulturze mogą zakłócać projektowanie przewodników i utrudniać późniejszą weryfikację edycji [1] [4].
Po potwierdzeniu sekwencji założyciela, następne sprawdzenie jest proste: czy docelowa strona ma użyteczny PAM?
Genomy ptaków i ryb: paralogi, selektywne przemiatania i duplikacja całego genomu
U ptaków, selektywne przemiatania związane ze szczepem mogą usunąć różnorodność sekwencji w docelowych loci. Ponadto, kopie paralogów odziedziczone z wcześniejszych zdarzeń duplikacji oznaczają, że specyficzność przewodnika musi być sprawdzona przed kontynuacją projektowania.
Ryby dodają kolejną warstwę. Duplikacja całego genomu pozostawiła zachowane kopie genów w wielu genomach, więc przewodnik skierowany na jedną kopię może również ciąć inne loci, chyba że screening poza celem uwzględnia tę historię duplikacji.
Kiedy ponownie sekwencjonować linię komórek założyciela przed projektowaniem przewodników
Ponowne sekwencjonowanie jest potrzebne, gdy materiał wyjściowy jest heterogeniczny lub gdy linia spędziła czas w ciągłej kulturze.Sekwencjonowanie całego genomu lub egzomu daje najjaśniejszy obraz, a ramiona homologii dawcy muszą pasować do rzeczywistej sekwencji założyciela przed rozpoczęciem jakiegokolwiek programu knock-in [2] [4].
| Gatunek | Główne wyzwanie genomowe | Zalecane działanie sekwencjonowania |
|---|---|---|
| Bydło (Angus/Wagyu) | SNP specyficzne dla rasy i warianty strukturalne | Sekwencjonowanie celowane lub WGS linii założycielskiej w celu potwierdzenia dopasowania gRNA [1] |
| Mioblasty świńskie | Wysoka gęstość SNP i szybki dryf podwojenia | Ponowne sekwencjonowanie przez pasaże z NGS [1] [4] |
| Ryby / gatunki morskie | Duplikacja całego genomu i zachowane kopie duplikatów | De novo montaż lub głębokie ponowne sekwencjonowanie linii założycielskiej [2] |
Po zablokowaniu sekwencji założycielskiej, zmienność alleli i dostępność PAM decydują o tym, co jest możliwe do zcelowania.W prostych słowach, specyficzne dla alleli niedopasowania i częstotliwość PAM określają, które loci mogą być w ogóle cięte.
Wariacja alleli i dostępność PAM determinują, które edycje są realistycznie możliwe do ukierunkowania
Gdy sekwencja założycielska jest ustalona, kolejne pytanie jest proste: czy każdy allel nadal może być edytowany w tym miejscu i czy jest dostępny użyteczny PAM? W praktyce projektowanie przewodnika sprowadza się do dwóch sprawdzeń: zachowania haplotypu i dostępu do PAM.
Unikanie cięcia specyficznego dla alleli u bydła, świń, kurczaków i ryb
Polimorfizm gdziekolwiek w 20-nukleotydowym protospacerze lub bezpośrednio przy PAM może uniemożliwić cięcie jednego allelu. Może to pozostawić cię z mieszanym pulą komórek, gdzie częściowe cięcie wygląda jak niska wydajność edycji, podczas gdy rzeczywistym problemem jest utrata allelu podczas cięcia.
Rozwiązanie jest proste.Sekwencjonuj docelowy locus w linii założycielskiej, mapuj haplotypy i blokuj przewodniki tylko w regionach, które są w pełni zachowane we wszystkich zidentyfikowanych allelach. Następnie ponownie sprawdź locus po przedłużonym pasażowaniu.
Jeśli miejsce nie jest zachowane w haplotypach, wybór PAM nie ma znaczenia.
Kiedy SpCas9 jest wystarczający, a kiedy potrzebne są nukleazy elastyczne względem PAM
Jeśli obecny jest PAM NGG, SpCas9 jest domyślnym wyborem. Jeśli go nie ma, należy albo przeprojektować cel, albo przejść do nukleazy Cas elastycznej względem PAM. Ta decyzja powinna pochodzić z sekwencji założycielskiej, a nie z genomu referencyjnego.
Porównanie gatunków: możliwość ukierunkowania i dopasowanie nukleazy w skrócie
| Gatunki | Typowe rodzaje komórek do edycji | Ograniczenie możliwości ukierunkowania | Najlepsze dopasowanie nukleazy |
|---|---|---|---|
| Bydło | Mioblasty, ADSCs, iPSCs | SNPs związane z rasą (e.g. , Angus vs.Wagyu) [1] | SpCas9, gdzie NGG jest dostępne; Cas elastyczny względem PAM, gdzie warianty ras blokują dostęp |
| Świnie | Mioblasty, Fibroblasty | Szybki dryf kulturowy w kolejnych pasażach [1] | SpCas9; przełącz na Cas elastyczny względem PAM, jeśli dryf zmienia miejsce PAM |
| Ptaki | Komórki satelitarne, Komórki macierzyste zarodkowe | Dryf genetyczny w ciągłej kulturze [4] | Preferowany Cas elastyczny względem PAM, gdzie nakładanie się paralogów ogranicza specyficzność SpCas9 |
| Ryby | Mioblasty (Pstrąg, Karp, Makrela) | Duplikacja całego genomu i paralogi [3] | Cas elastyczny względem PAM do nawigacji po zduplikowanych loci |
Gdy miejsce jest możliwe do namierzenia, preferencja naprawy decyduje, czy edycja stanie się knockoutem czy knock-inem.
Stronniczość szlaku naprawczego i projekt dawcy wpływają na wyniki knockout i knock-in
Przewodnik może ciąć czysto, ale nadal nie osiągnąć celu, jeśli komórka naprawi przerwę w niewłaściwy sposób. Ta stronniczość naprawy często decyduje, czy kończysz z knockoutem, mieszanym profilem indel, czy precyzyjnym knock-in. W pracy nad mięsem hodowlanym, gdzie linie somatyczne, takie jak mioblasty i komórki macierzyste pochodzące z tkanki tłuszczowej (ADSC), są codziennym materiałem, ta stronniczość może decydować, czy program edycji posuwa się naprzód, czy zatrzymuje.
NHEJ, HDR i HMEJ stronniczość w liniach komórkowych ssaków, ptaków i ryb
Po cięciu głównym problemem jest to, który szlak naprawczy dominuje w linii produkcyjnej komórek. W somatycznych liniach bydła i świń, Non-Homologous End Joining (NHEJ) jest zazwyczaj główną drogą.To sprawia, że proste nokauty są bardziej osiągalne niż precyzyjne insercje, zwłaszcza gdy celem jest zakłócenie genu w celu skrócenia czasu podwojenia lub wsparcia adaptacji do zawiesiny. Ivy Farm Technologies pokazało to bezpośrednio: nokauty CRISPR/Cas9 endogennego genu NF2 w mioblastach świńskich i bydlęcych oraz ADSC zmniejszyły czasy podwojenia i wspierały adaptację do zawiesiny, co jest kluczowym krokiem dla skalowania mięsa hodowlanego [1].
Naprawa kierowana homologicznie (HDR) może działać w tych liniach, ale wydajność jest często niska, chyba że system jest starannie dostrojony. Gdy potrzebujesz precyzyjnej insercji, Homology-Mediated End Joining (HMEJ) lub inne metody z mikrohomologią mogą zapewnić lepsze wskaźniki integracji. Główna kwestia jest prosta: testuj zachowanie naprawy w rzeczywistym typie komórek produkcyjnych. Przechodzenie i adaptacja do zawiesiny mogą zmieniać wyniki edycji w czasie [1][4].
Komórki ptaków mogą dobrze edytować, ale wyniki naprawy mają tendencję do większej zmienności między próbami. Linie ryb również często dobrze edytują, ale walidacja uwzględniająca duplikacje jest istotna, ponieważ paralogi mogą ukrywać prawdziwą edycję [3].
Projektowanie szablonu dawcy według gatunku: formatowanie i dopasowanie alleli
W przypadku knock-inów projekt dawcy powinien podążać za ścieżką naprawy, a nie tylko za genomem referencyjnym. Dopasuj dawcę do haplotypu założyciela, a nie do referencji gatunku. W heterozygotycznych liniach bydła i świń, dawca zbudowany tylko z sekwencji referencyjnej może pominąć jeden allel [1].
W przypadku ryb projektowanie uwzględniające duplikacje jest koniecznością, ponieważ paralogi mogą skomplikować odczyt edycji. Sprawdź zarówno przewodnik, jak i dawcę względem dokładnego locus, który chcesz zmienić, zamiast zakładać, że jedna sekwencja referencyjna opowiada całą historię.
Naprawa biasu i projekt knock-in według gatunków: tabela porównawcza
Poniższa tabela przekształca te różnice w naprawie w wybory projektowe na poziomie gatunków.
| Gatunek | Dominująca tendencja naprawcza | Główne wyzwanie dla precyzyjnego wstawienia | Preferowany dawca lub strategia naprawcza | Kluczowy czynnik optymalizacji |
|---|---|---|---|---|
| Bydło | NHEJ | Niska wydajność HDR w somatycznych mioblastach i ADSC | dsDNA lub ssODN; HMEJ dla precyzyjnego wstawienia | Dopasowanie haplotypu założyciela |
| Świnie | NHEJ | Dopasowanie specyficzne dla allelu; ograniczona żywotność in vitro | Dawca dopasowany do allelu lub knockout, w zależności od celu edycji | Projekt dawcy dopasowanego do allelu |
| Ptaki | Zależne od mechanizmu | Zmienna skuteczność naprawy | Dostarczenie RNP dla kontrolowanej naprawy | Dostarczenie RNP dla ściślejszej kontroli czasu |
| Ryby | Efektywna edycja, zmienność ścieżki | Duplikacja całego genomu; interferencja paralogów | Projekt przewodnika i dawcy uwzględniający duplikację | Walidacja obu kopii paralogów |
Wniosek: ramy decyzyjne dla specyficznej dla gatunku edycji CRISPR w mięsie hodowlanym
Praktyczna zasada decyzyjna jest prosta: sekwencjonuj linię założycielską, potwierdź strukturę locus, sprawdź zmienność alleli, wybierz nukleazę kompatybilną z PAM, a następnie dopasuj strategię naprawy do linii komórkowej.
Ten przepływ pracy działa na poziomie gatunku, ale zmienność linii założycielskiej nadal wpływa na wynik. Mówiąc prościej, domyślne ustawienia na poziomie gatunku nie przenoszą się niezawodnie z jednej linii założycielskiej na inną. Walidacja linii założycielskiej to minimalny próg [1].
Jest jeszcze jeden punkt, którego zespoły nie mogą traktować lekko. Ciągła hodowla może wprowadzać dryf genetyczny z czasem, co oznacza, że plan edycji, który działał na wcześniejszym etapie, może nie zachowywać się tak samo później. Z tego powodu zespoły powinny wbudować regularne testy genetyczne i funkcjonalne w przepływ pracy, w tym sekwencjonowanie RNA i profilowanie epigenomiczne, oraz ustalić limit pasażu przed rozpoczęciem dryfu funkcji [4].
Kluczowe wnioski dla zespołów R&D, produkcji i zaopatrzenia
Dla zespołów wdrażających ten przepływ pracy priorytety są dość jasne.
- Zespoły R&D powinny sekwencjonować wcześnie i projektować od linii założycielskiej.
- Zespoły produkcyjne powinny dopasować projekt dawcy do preferencji naprawczych linii komórkowej.
FAQs
Dlaczego genom referencyjny gatunku nie wystarcza?
Genom referencyjny gatunku nie wystarcza do edycji genów mięsa hodowlanego. Daje ogólną mapę, ale nie rzeczywistą biologię linii komórkowej, z którą pracujesz.
Ta luka ma znaczenie. W przypadku gatunków rolniczych kluczowe elementy regulacyjne, takie jak promotory, wzmacniacze i regiony nieulegające translacji, są często słabo scharakteryzowane. Nawet jeśli genom referencyjny wygląda na kompletny na papierze, może nie pokazywać, jak dany locus zachowuje się w twoich komórkach.
Pomija również różnice specyficzne dla linii komórkowej, które bezpośrednio wpływają na wyniki edycji, w tym ploidalność, wzorce alleli i preferencje ścieżek naprawczych.Bez tych informacji naukowcy nie mogą wiarygodnie przewidywać wyników edycji ani dostrajać cech, takich jak wzrost zawiesiny i efektywna proliferacja.
Skąd mam wiedzieć, czy każda allela została faktycznie edytowana?
Aby potwierdzić, że każda allela została edytowana w twoich liniach komórkowych mięsa hodowlanego, przeprowadzaj regularne monitorowanie genetyczne. Sekwencjonowanie całogenomowe daje szeroki obraz zmian sekwencji w każdym locus, co pomaga sprawdzić, czy edycja miała miejsce tam, gdzie się spodziewano, i czy coś jeszcze się zmieniło po drodze.
Sekwencjonowanie egzomu może następnie pomóc w określeniu zygotyczności, pokazując, czy edycja jest homozygotyczna czy heterozygotyczna.
Kiedy powinienem wybrać knockout zamiast knock-in?
Wybierz knockout , gdy głównym celem jest wyłączenie genu i poprawa cechy komórki.W mięsie hodowlanym zespoły często używają tego, aby wspierać szybszy wzrost, unieśmiertelnienie lub zmniejszenie potrzeb wejściowych poprzez zmianę metabolizmu komórkowego.
Wybierz knock-in , gdy potrzebujesz dodać nowe informacje genetyczne lub zwiększyć ekspresję użytecznego białka. Mówiąc prościej, wybór sprowadza się do tego: czy usuwasz barierę, czy dodajesz nową funkcję?


