

Jeśli knockout nie poprawia zdefiniowanej cechy procesu, jest to tylko edycja, a nie użyteczna linia komórkowa.
Dla inżynierów bioprocesów, naukowców zajmujących się hodowlą komórek i zespołów R&D zajmujących się mięsem hodowlanym, główny punkt artykułu jest prosty: zaczynam od wąskiego gardła, ustalam progi zaliczenia/niezaliczenia przed edycją, a następnie buduję przepływ pracy wokół mierzalnego wskaźnika produkcji , takiego jak krótszy czas podwojenia, wzrost w zawiesinie lub usunięcie antygenu powierzchniowego. Artykuł jasno wskazuje, że dane edycji na poziomie puli są przydatne do rankingu przewodników, ale knockout klasy wydania wymaga danych genotypu na poziomie klonu, danych o utracie białka, kontroli linii i testów procesu wieloprzebiegowego (często obejmujących pierwotne vs unieśmiertelnione linie komórkowe).
Przypadek z lipca 2024 roku z Ivy Farm powiązał knockout NF2 w mioblastach świńskich i bydlęcych oraz komórkach macierzystych pochodzących z tkanki tłuszczowej z krótszymi czasami podwojenia, wsparciem dla hodowli w zawiesinie i zachowaniem markerów linii.Ale artykuł nie traktuje tego jako uniwersalne. Nadal potrzebuję walidacji specyficznej dla gatunku, linii i celu, zanim przejdę do przodu z jakimkolwiek edytowanym klonem.
Co mówi artykuł, aby zrobić:
- Zdefiniuj cel edycji w kategoriach procesowych, a nie kosztowych
- Ustal progi z góry dla wzrostu, dopasowania zawieszenia, retencji markerów i stabilności pasażu
- Wybierz docelowy gen dopiero po sprawdzeniu roli w szlaku, efektu linii i ryzyk związanych z bezpieczeństwem
- Zaprojektuj przewodniki przeciwko konstytutywnym eksonom kodującym i sprawdź locus rodzicielski za pomocą PCR i Sanger najpierw
- Używaj przepływów pracy bez dawcy z dostarczeniem RNP tam, gdzie to możliwe, aby ograniczyć czas ekspozycji edytora
- Traktuj masowe pule jako wczesny ekran, a nie dowód na knockout
- Potwierdź utratę bialleliczną, następnie sprawdź brak białka
- Waliduj klon w porównaniu z dopasowanymi kontrolami rodzicielskimi lub tylko Cas9, bez sgRNA
- Wydawaj tylko linie, które przejdą cztery warstwy: tożsamość edycji, konsekwencje molekularne, funkcję komórki i dopasowanie produkcyjne
Wyróżnia się kilka punktów technicznych.Artykuł zauważa, że dziki typ SpCas9 może tolerować 3 do 5 niedopasowań, , dlatego przegląd poza celem nie może być pomijany. Wskazuje również, że przewodniki skrócone do 17-18 bp mogą zmniejszyć aktywność poza celem nawet o 500-krotnie przy niewielkim spadku wydajności na celu. A ponieważ naprawa bez dawcy często daje mieszane indel, nie mogę zakładać, że „edytowany” oznacza „null” - allele w ramce mogą nadal zachować funkcję.
Gdzie uznałem ten fragment za najbardziej przydatny, to jego dyscyplina: sam genotyp nie wystarczy, szybki wzrost sam nie wystarczy, a dane zawieszenia z jednego pasażu nie wystarczą. Linia nokautowa ma znaczenie tylko wtedy, gdy zachowuje tożsamość linii, pozostaje stabilna przez co najmniej cztery pasaże w trzech powtórzeniach, i nadal działa w tym samym formacie kultury i gęstości, z jakimi będzie się mierzyć w produkcji.
To jest ramka dla reszty artykułu: przejście od wąskiego gardła, do edycji projektu, do klonowania ekranu, do decyzji o wydaniu bez mieszania tych kroków razem.
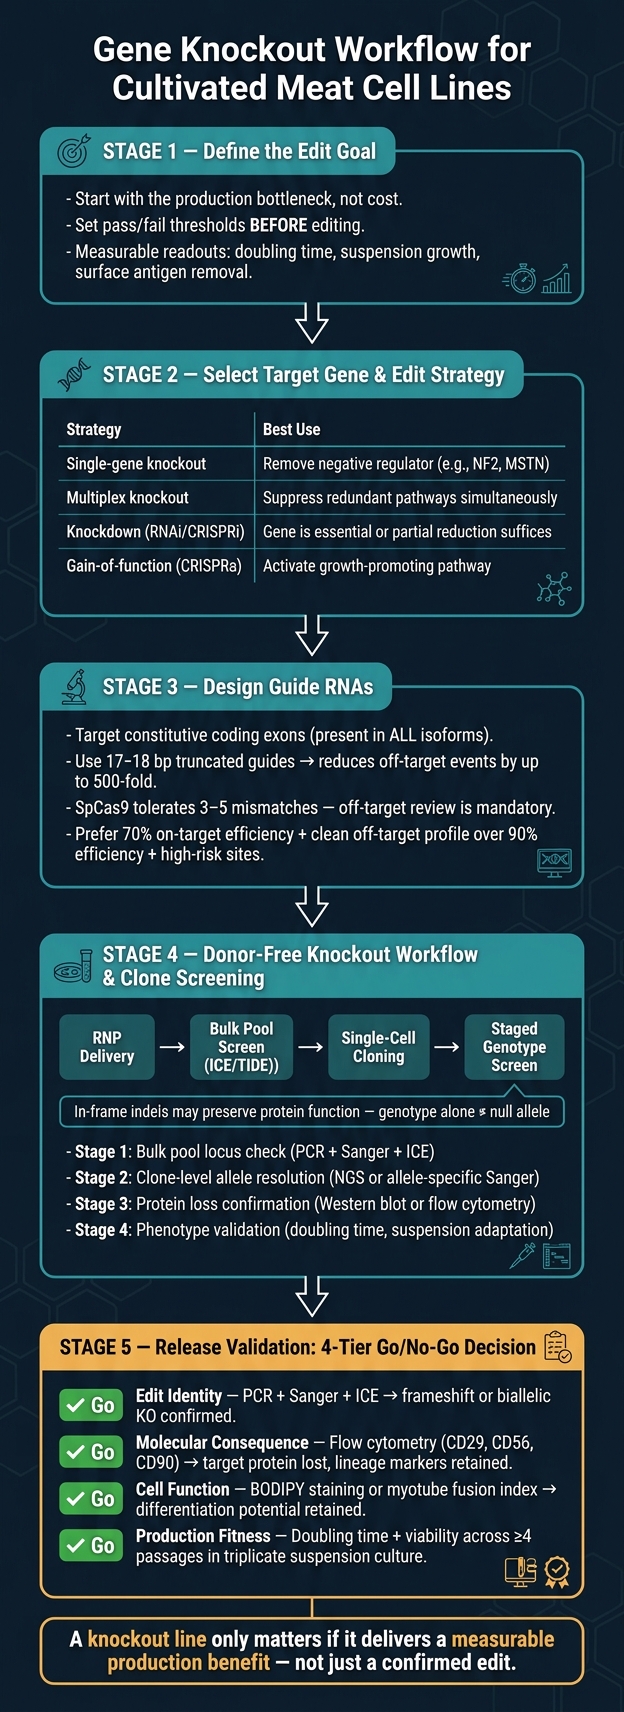
Przebieg pracy z wyłączeniem genu dla linii komórkowych mięsa hodowlanego
Wybierz docelowy gen i wybierz odpowiednią strategię edycji
Zmapuj cechę do ścieżki możliwej do ukierunkowania lub węzła regulacyjnego
Gdy cel edycji jest jasny, następnym krokiem jest prześledzenie wąskiego gardła produkcji do konkretnego węzła regulacyjnego. Wolny czas podwojenia lub słaby wzrost w zawiesinie często mapuje się do zdefiniowanego węzła ścieżki, co stanowi znaczące wyzwania dla skalowania mięsa hodowlanego, takie jak Hippo, RAS, WNT/β-katenina lub NOTCH [1].
To brzmi prosto na papierze. W praktyce rzadko tak jest. Gen, który wspiera wzrost w jednym środowisku, może być niezbędny do przetrwania lub różnicowania w innym.Zanim zdecydujesz się na cel, sprawdź dowody dotyczące gatunków i typów komórek, które Cię interesują. Sprawdź, czy funkcja genu jest redundantna czy nieredundantna, i potwierdź, że utrata funkcji nie zaszkodzi potencjałowi miogenicznemu lub adipogennemu, stabilności genomowej ani żadnej cechy związanej z bezpieczeństwem końcowego produktu [1].
Oceń kandydatów na cele bez zakładania, że jakikolwiek gen jest uniwersalnie odpowiedni
NF2 - który koduje białko Merlin - jest dobrym przykładem celu knockout w badaniach nad mięsem hodowlanym. Ivy Farm Technologies pokazało, że knockout NF2 skrócił czas podwojenia i wspierał adaptację do zawiesiny w liniach świńskich i bydła, zachowując markery linii [1]. Ponieważ NF2 znajduje się na przecięciu szlaków sygnalizacyjnych Hippo, RAS, WNT/β-katenina i NOTCH, jeden knockout może zmienić kilka ścieżek wzrostu jednocześnie bez edycji multipleksowej [1].
MSTN (miostatyna) jest kolejnym celem, który często się pojawia, zwłaszcza gdy celem jest poprawa wydajności komórek mięśniowych. Regulatory cyklu komórkowego, takie jak RB1 i TP53, również pojawiają się w strategiach multipleksowych zbudowanych w celu przedłużenia zdolności proliferacyjnej. Jednak nie istnieje coś takiego jak uniwersalny cel. Gen, który działa w jednym gatunku lub typie komórki, nadal wymaga osobnej walidacji w innym. Ta sama edycja może dać inny fenotyp lub przynieść ze sobą niestabilność. Jeśli nie masz danych w linii przed sobą, nie zakładaj, że wynik się przeniesie [1].
Porównaj knockout z knockdown, edycję multipleksową i podejścia gain-of-function
| Strategia edycji | Kiedy używać | Główne ograniczenie | Wymagane dowody |
|---|---|---|---|
| Knockout pojedynczego genu | Aby trwale usunąć negatywnego regulatora (e.g. , NF2, MSTN), który bezpośrednio ogranicza wzrost lub adaptację zawiesiny [1] | Potencjał nieodwracalnej utraty istotnych funkcji wtórnych | Potwierdzenie nieistotności dla żywotności i różnicowania w docelowej linii [1] |
| Knockout multipleksowy | Kiedy redundantne ścieżki muszą być jednocześnie tłumione (e.g. , RB1, TP53, i RAS kombinacje) [1] | Zwiększone ryzyko niestabilności genomowej i kumulatywne efekty poza celem [1] | Dane o efekcie synergistycznym i rygorystyczne badania poza celem we wszystkich edytowanych loci [1] |
| Knockdown (RNAi/siRNA/CRISPRi) | Kiedy gen jest niezbędny lub częściowa redukcja wystarcza do osiągnięcia cechy [1] | Często przejściowe; wymaga ciągłego dostarczania lub stabilnej integracji shRNA | Dane dotyczące odpowiedzi na dawkę pokazujące, że częściowa redukcja osiąga docelowy fenotyp [1] |
| Gain-of-function (CRISPRa lub knock-in) | Aby aktywować ścieżkę promującą wzrost lub dodać nową zdolność [1] | Złożone procesy insercji; ryzyko transformacji onkogennej lub obciążenia metabolicznego [1] | Weryfikacja, że zwiększona ekspresja nie hamuje potencjału różnicowania [1] |
Użyj tego porównania, aby ustalić strategię edycji przed rozpoczęciem projektowania przewodnika.Jeśli gen jest niezbędny lub jeśli zmiana, której potrzebujesz, dotyczy stopnia, a nie pełnego usunięcia, knockdown lub CRISPRi zapewnia ściślejszą kontrolę. Edycja multipleksowa ma sens tylko wtedy, gdy dane dotyczące pojedynczego genu pokazują, że dodatkowa złożoność jest tego warta [1][2].
Po ustaleniu klasy edycji, zaprojektuj RNA przewodników dla całkowitej utraty funkcji.
sbb-itb-ffee270
Zaprojektuj RNA przewodników dla prawdziwej utraty aktywności genu
Potwierdź sekwencję referencyjną, strukturę transkryptu i profil wariantów
Zacznij od modelu genu, a nie od sekwencji przewodnika. Projektowanie przewodników powinno rozpocząć się dopiero po zakończeniu wyboru celu i potwierdzeniu sekwencji linii rodzicielskiej.
Użyj poprawnego genomu referencyjnego specyficznego dla gatunku. Następnie zmapuj pełną strukturę transkryptu: granice eksonów, początek i koniec sekwencji kodującej oraz wszystkie zannotowane izoformy. Po tym, zweryfikuj samą linię rodzicielską.Jeśli przewodnik pominie konstytutywny ekson, funkcjonalny izoform może nadal przetrwać.
PCR-amplifikuj locus rodzicielski, sekwencjonuj amplicon metodą Sangera i porównaj sekwencje w różnych pasażach, aby potwierdzić sekwencję początkową. Użyj ICE do oznaczania istniejących wcześniej wariantów lub polimorfizmów. Gdy locus początkowy jest ustalony, uszereguj przewodniki według prawdopodobieństwa przesunięcia ramki odczytu i profilu poza celowego.
Uszereguj miejsca przewodników według prawdopodobieństwa przesunięcia ramki odczytu i niskiego ryzyka poza celowego
Po potwierdzeniu modelu genu, skoncentruj wybór przewodników na konstytutywnych eksonach kodujących. Są to eksony obecne w każdym zannotowanym izoformie, więc edycje tam są bardziej prawdopodobne, aby zakłócić wszystkie istotne transkrypty.
Ryzyko poza celowe jest równie ważne. Dziki typ SpCas9 może tolerować trzy do pięciu niedopasowań, zwłaszcza w pozycjach oddalonych od PAM.Tak więc przewodnik z wysokim przewidywanym wynikiem na celu może nadal powodować niezamierzone cięcia, zwłaszcza po klonalnej ekspansji.
Jednym prostym sposobem na zmniejszenie tego ryzyka jest skrócenie przewodnika do 17–18 bp. Może to zmniejszyć zdarzenia edycji poza celem nawet 500-krotnie przy niewielkiej utracie dokładności na celu [2]. W praktyce przewodnik z 70% wydajnością na celu i czystym profilem poza celem jest zazwyczaj lepszym punktem wyjścia niż ten z 90% wydajnością i kilkoma miejscami o wysokim ryzyku przewidywanym.
Ta klasyfikacja powinna bezpośrednio wpływać na wybór nukleazy poniżej.
Wybierz system edycji, który pasuje do celu knockout
System edycji kształtuje projekt przewodnika tak samo jak gen docelowy. Dla pracy knockout bez dawcy w liniach komórkowych mięsa hodowlanego, główne opcje są poniżej.
| System edycji | Wymagane DSB | Typowy mechanizm knockout | Implikacje projektowania przewodnika | Najlepsze zastosowanie |
|---|---|---|---|---|
| SpCas9 Nukleaza | Tak | Indele przesunięcia ramki poprzez NHEJ | Przewodnik 20 bp + NGG PAM; wysokie ryzyko poza celem | Standardowy knockout w solidnych liniach pierwotnych lub unieśmiertelnionych |
| Warianty Hi-Fi Cas9 | Tak | Indele przesunięcia ramki poprzez NHEJ | Przewodnik 20 bp + NGG PAM; węższe ryzyko poza celem | Kiedy ryzyko poza celem jest podwyższone |
| Cas12a (Cpf1) | Tak | Indele przesunięcia ramki poprzez NHEJ | PAM bogaty w T, taki jak TTTN; tworzy cięcia schodkowe | Loci bogate w AT lub multipleksowy knockout kilku celów |
Dla wielu zadań knockout bez dawcy w liniach komórkowych mięsa hodowlanego, nukleaza SpCas9 z przewodnikiem skróconym do 17–18 bp jest solidnym punktem wyjścia.Warianty wysokiej wierności mają sens, gdy krajobraz poza celem jest zatłoczony. Cas12a jest dobrym wyborem, gdy locus jest bogaty w AT lub gdy jedna transfekcja musi zakłócić kilka genów jednocześnie.
Główna zasada jest prosta: dopasuj system do celu, zamiast domyślnie używać platformy, której używasz najczęściej. Ten wybór ustala zasady przewodnika i kształtuje przebieg pracy bez dawcy oraz ekranowanie klonów, które następują.
Przeprowadź przebieg pracy bez dawcy i poprawnie ekranuj klony
Przeprowadź przebieg pracy bez dawcy z możliwością śledzenia edycji
Gdy przewodnik i nukleaza są zablokowane, następnym krokiem jest dostarczenie bez dawcy i etapowe ekranowanie klonów.
Przed wprowadzeniem jakiejkolwiek nukleazy, uwierzytelnij linię rodzicielską. Zarejestruj gatunek, źródło tkanki, numer pasażu oraz kariotyp lub profil STR. Ten początkowy zapis daje czysty punkt odniesienia dla wszystkiego, co następuje.
W przypadku dostawy, kompleksy RNP (rybonukleoproteinowe) - wstępnie złożone białko Cas9 i sgRNA - są zdecydowanie preferowane w porównaniu do formatów plazmidowych lub wirusowych [2]. W prostych słowach, dostarczanie RNP utrzymuje edytor wewnątrz komórki przez krótszy czas, co zmniejsza ryzyko niskoczęstotliwościowego cięcia poza celem [2]. Po transfekcji, daj komórkom wystarczająco dużo czasu na regenerację przed jakimkolwiek etapem wzbogacania. Wzbogacanie może zwiększyć odsetek edytowanych komórek w puli, ale jest opcjonalne i powinno być zarejestrowane w każdym przypadku [1].
W procesie knockout bez dawcy, całe naprawianie pochodzi z łączenia końców. To ma znaczenie, ponieważ nie każdy indel daje allel null. Mutacje w ramce odczytu - indels w dokładnych wielokrotnościach trzech par zasad - mogą pozostawić ramkę odczytu nienaruszoną i mogą zachować funkcję białka [1]. Tak więc badanie genotypu musi wykazać allel null oraz, w razie potrzeby, bialleliczną utratę, a nie tylko „nastąpiła edycja”.
Poniższa tabela pokazuje rekordy warte zachowania na każdym etapie, aby historia edycji była możliwa do prześledzenia.
| Krok | Wymagane dokumenty |
|---|---|
| Autoryzacja rodzicielska | Gatunek, źródło tkanki, numer pasażu, kariotyp/profil STR |
| Projektowanie przewodnika | ID gRNA, sekwencja i długość |
| Dostawa | Typ nukleazy, format dostawy (RNP/plazmid), parametry transfekcji |
| Przesiewanie puli masowej | Wyniki ICE/TIDE, procent indeli przesunięcia ramki odczytu |
| Izolacja klonalna | Metoda izolacji (FACS lub rozcieńczenie limitujące), ID klonu, mapa płytki |
| Walidacja genotypu | Sekwencjonowanie specyficzne dla allelu, potwierdzenie utraty biallelicznej |
| Dopasowanie funkcjonalne | Dane dotyczące czasu podwojenia, ekspresja markerów powierzchniowych, zdolność zawiesinowa |
Zdecyduj, kiedy pule masowe są przydatne, a kiedy potrzebne są linie klonalne
Pule edytowane masowo są przydatne, gdy potrzebujesz szybkich odczytów.Dobrze sprawdzają się przy ocenie wydajności przewodników RNA, przeprowadzaniu wczesnych porównań wzrostu wśród kandydatów na cele oraz przy walidacji celów na dużą skalę bez konieczności spędzania tygodni na izolacji klonalnej. W 2023 roku badacze z Ivy Farm Technologies wykorzystali pulę mioblastów świńskich transfekowanych Cas9 i sgRNA celującym w gen NF2, aby ocenić wydajność nokautu na poziomie puli za pomocą sekwencjonowania Sangera i analizy ICE przed przejściem do izolacji klonalnej [1].
Jednak jest pewien haczyk. Łączenie końców daje mieszaną populację: komórki typu dzikiego, edycje heterozygotyczne, przesunięcia ramki odczytu i allele w ramce odczytu, wszystkie w tej samej puli. Każdy fenotyp, który mierzysz, jest średnią z tej mieszanki, a nie czystym odczytem nokautu. Dlatego pula zbiorcza nie może wspierać wiarygodnego twierdzenia o nokaucie [1].
| Funkcja | Masowo Edytowane Pula | Pojedynczo-Komórkowe Klony |
|---|---|---|
| Szybkość | Wysoka (dni) | Niska (tygodnie do miesięcy) |
| Rozdzielczość Genotypu | Niska (średnia populacyjna) | Wysoka (zdefiniowane allele potwierdzone) |
| Zróżnicowanie Klonalne | Ukryte przez średnią populacyjną | Widoczne; pozwala na wybór najlepiej działającej linii |
| Obciążenie Przesiewowe | Niskie | Wysokie |
| Przydatność | Odkrywanie celów, ranking przewodników, wczesne badania wzrostu | Rozwój procesów, walidacja utraty białka, wydanie regulacyjne |
Przejdź do klonowania pojedynczych komórek, gdy rozwój procesu wymaga zdefiniowanego genotypu.Podczas rozrostu klonów, rozszerzaj pod warunkami zachowującymi linię i śledź markery rodzicielskie [1].
Przeprowadź badanie genotypu, utraty białka i fenotypu funkcjonalnego w etapach
Badanie działa najlepiej jako etapowy przepływ pracy, a nie jedno duże przejście.
- Etap 1 to sprawdzenie locus w puli masowej. Amplifikuj region docelowy za pomocą PCR i analizuj go przez sekwencjonowanie Sangera z dekompozycją ICE. Daje to ogólny wynik wydajności edycji i rozkład indeli, co zazwyczaj wystarcza, aby zdecydować, czy izolacja klonalna jest warta wykonania.
- Etap 2 rozwiązuje allele na poziomie klonów. Gdy klony są izolowane, sekwencjonowanie ampliconów (NGS) lub specyficzne dla allelu Sangera może pokazać, czy każdy klon ma bialleliczną utratę, czy też jeden allel uciekł jako wariant w ramce.
- Etap 3 sprawdza utratę białka.Sam genotypu nie dowodzi utraty funkcji. Skrócone białko może nadal zachować pewną aktywność. Western blot lub cytometria przepływowa dostarczają bezpośrednich dowodów na brak białka.
- Etap 4 testuje fenotyp związany z celem edycji: czas podwojenia, adaptację do zawiesiny lub konkretną cechę, którą knockout miał zmienić. Ten odczyt musi pozostać stabilny w ustalonym oknie pasażu [1] [2].
Poniższa tabela pokazuje, co każda metoda przesiewowa może Ci powiedzieć - i czego nie może.
| Metoda | Co ustala | Ograniczenia |
|---|---|---|
| Analiza Sanger + ICE | Częstotliwość indeli na poziomie puli i rozkład przesunięcia ramki odczytu | Nie może rozwiązać specyficznych kombinacji alleli w pojedynczych komórkach |
| Selekcjonowanie ampliconów (NGS) | Identyfikacja alleli o wysokiej rozdzielczości; wykrywanie miejsc poza celem | Wyższy koszt; dłuższy czas realizacji |
| Cyfrowy PCR (ddPCR) | Precyzyjne określenie częstotliwości edycji lub liczby kopii | Wymaga specyficznego projektu sondy dla każdego celu |
| Western Blot / Proteomika celowana | Utrata białka na poziomie celu | Półilościowe; wymaga zwalidowanego przeciwciała |
| Cytofluorymetria przepływowa | Utrata białka powierzchniowego lub wewnątrzkomórkowego; zachowanie markerów linii | Wymaga wysokiej jakości przeciwciał zwalidowanych dla gatunku |
| Wieloprzebiegowy test wzrostu | Stabilność czasu podwojenia i wydajność produkcji | Czasochłonne; minimum cztery pasaże dla statystycznej ważności |
Dla zespołów przechodzących z laboratorium do produkcji, zrozumienie kosztów skalowania linii komórkowych w różnych systemach bioreaktorów jest kluczowym kolejnym krokiem.
Zawsze porównuj edytowane linie klonalne z dopasowaną linią rodzicielską kontrolą tylko z Cas9, bez sgRNA. Ta kontrola pomaga oddzielić efekty specyficzne dla edycji od stresu transfekcji i hodowli przed walidacją dopasowania do procesu.
Waliduj knockout pod kątem dopasowania do procesu produkcji mięsa hodowlanego i wydania
Waliduj pod kątem tożsamości edycji, konsekwencji molekularnych, funkcji komórek i wydajności produkcji
Gdy zakończone są badania genotypu klonalnego i białkowe, kolejnym krokiem jest walidacja wydania. Na tym etapie waliduj tylko linie, które już spełniają kryteria wydania. Pakiet wydania powinien obejmować cztery kontrole: tożsamość edycji, konsekwencje molekularne, funkcję komórek i wydajność produkcji.
Tożsamość edycji jest potwierdzana przez amplifikację PCR docelowego locus, a następnie sekwencjonowanie Sanger i analizę ICE.To pokazuje, czy klon posiada przesunięcie ramki odczytu lub bialleliczny knockout na etapie wydania [1].
Następnie sprawdź utrata białka i zachowanie linii za pomocą cytometrii przepływowej dla CD29, CD56 i CD90. To potwierdza utratę docelowego białka i pokazuje, że komórka zachowała swoją tożsamość linii poprzez proces edycji [1].
Jeśli te markery linii są nadal obecne, przejdź do różnicowania. Walidacja funkcji komórki wykorzystuje BODIPY barwienie dla linii adipogennych i indeks fuzji miotub dla linii miogennych [1].
Dopiero po tym należy przetestować, czy linia nadal działa w warunkach procesowych. Sprawność produkcyjna powinna być oceniana w hodowli zawiesinowej.Krzywe wzrostu w kolbach Erlenmeyera w trzech powtórzeniach, przeprowadzane przez co najmniej cztery pasaże, są tutaj przydatne, ponieważ mogą ujawnić defekty wzrostu, które pojawiają się później, a nie od razu [1][2].
Mierz cechy, które mają znaczenie, używając dopasowanych kontroli linii rodzicielskich
Każdy test w ramach walidacji powinien być przeprowadzany w porównaniu z dopasowaną kontrolą linii rodzicielskiej, czy to komórkami typu dzikiego, czy pulą Cas9 bez sgRNA. Bez tego punktu odniesienia trudno jest stwierdzić, czy zaobserwowana zmiana wynika z samego nokautu, czy ze stresu związanego z edycją.
Gdzie proces tego wymaga, dodaj testy stresu i stabilności do pakietu wydania. Przeżywalność po wyzwaniu wysokim ścinaniem lub amoniakiem może służyć jako odczyt istotny dla procesu. Stabilność genomu można sprawdzić poprzez kariotypowanie lub ukierunkowane NGS na przewidywanych miejscach poza celem.
Podjąć decyzję o wydaniu odpowiednią do celu
Klon powinien przejść dalej tylko wtedy, gdy spełnia z góry określone progi w zakresie edytowania tożsamości, konsekwencji molekularnych, funkcji komórkowej i wydajności produkcji, bez szkody dla tożsamości, stabilności genomu lub wydajności procesu.
| Poziom walidacji | Typ dowodu | Test / Metoda | Kontrola | Kryterium akceptacji | Decyzja |
|---|---|---|---|---|---|
| Edytuj tożsamość | Charakterystyka allelu | PCR + sekwencjonowanie Sangera + analiza ICE | Rodzicielski typ dziki | Potwierdzona zmiana ramki odczytu lub bialleliczny knockout | Idź / Nie idź |
| Konsekwencje molekularne | Utrata białka; zachowanie linii | Cytometria przepływowa (CD29, CD56, CD90) | Basen tylko z Cas9 | Utrata docelowego białka; zachowane markery linii | Idź / Nie idź |
| Funkcja komórki | Potencjał różnicowania | Barwienie BODIPY lub indeks fuzji miotub | Dopasowana linia rodzicielska | Zachowany lub zwiększony potencjał różnicowania | Idź / Nie idź |
| Przydatność produkcyjna | Stabilność wzrostu w zawiesinie | Czas podwojenia i żywotność w wielu pasażach | Kontrola rodzicielska | Stabilny, skrócony czas podwojenia w zawiesinie | Idź / Nie idź |
| Tolerancja na stres procesowy | Żywotność pod wpływem stresu | Test żywotności po wyzwaniu wysokiego ścinania lub amoniaku | Kontrola standardowego medium | Wysoka żywotność pod wpływem stresu związanego z procesem | Idź / Nie idź |
| Stabilność genomowa | Bezpieczeństwo poza celem | Kariotypowanie lub ukierunkowane NGS w przewidywanych miejscach poza celem | Rodzicielski typ dziki | Brak niedopuszczalnych mutacji poza celem lub translokacji | Idź / Nie idź |
Eksperyment CRISPR KO vs CRISPR KI z użyciem CRISPR-Cas9
Wniosek: Połącz sukces edycji z istotnością produkcji
Po walidacji ostatnim pytaniem jest, czy edycja poprawia produkcję.W programie mięsa hodowlanego, knockout genu jest wart utrzymania tylko wtedy, gdy przynosi mierzalną korzyść produkcyjną - nie tylko potwierdzoną edycję [1].
Przypadek NF2 pokazuje, dlaczego genotyp musi być sprawdzany wraz z ekspresją białka, tożsamością linii i danymi wzrostu, zanim linia zostanie uznana za odpowiednią. To jest różnica między scharakteryzowanym klonem a linią, która ma tylko zedytowany genotyp.
Nawet wtedy, kontekst procesu może zmienić wynik. Przetestuj klon w tym samym medium, formacie kultury i gęstości komórek, z jakimi będzie miał do czynienia w produkcji, a nie tylko w kulturze odkrywczej. To oznacza sprawdzenie wydajności w różnych składach medium, formatach zawiesiny i stabilności pasażu przed podjęciem decyzji o wydaniu.
Tylko klony, które przejdą wszystkie cztery poziomy wydania, są gotowe do wydania.
Najczęściej zadawane pytania
Dlaczego sam genotyp nie wystarcza?
Sam genotyp nie wystarcza. W produkcji mięsa hodowlanego wydajność zależy od współdziałania między potencjałem genetycznym, warunkami procesu, a pamięcią stanu komórki.
Edytowanie genów może naprawić pewne twarde ograniczenia, ale nie zastępuje precyzyjnej kontroli procesu. Pożywka może dostarczać zewnętrznych sygnałów, ale te sygnały nie ustalają na stałe pamięci stanu komórki. A gdy sygnały zostaną usunięte, nie mogą powstrzymać powrotu szumu transkrypcyjnego.
Dlatego udana produkcja zależy od współdziałania wszystkich trzech elementów: projektowania genów, optymalizacji pożywki, i dopasowania bioreaktora.
Kiedy powinienem używać pul zamiast klonów?
Używaj pul w początkowych etapach projektowania wyłączeń genów i rozwoju procesu.Pozwalają szybciej ocenić ogólny efekt edycji w zróżnicowanej populacji, co pomaga w przesiewaniu o wysokiej przepustowości i wczesnej walidacji.
Pule również zmniejszają ryzyko błędu lub dryfu fenotypowego, które mogą pojawić się, gdy zbyt wcześnie polegasz na pojedynczym klonie.
Skąd mam wiedzieć, że knockout jest gotowy do produkcji?
Knockout jest gotowy do produkcji, gdy edytowana linia komórek mięsa hodowlanego pozostaje genetycznie i fenotypowo stabilna podczas długotrwałego pasażowania, jednocześnie utrzymując wysoką żywotność i funkcję miogeniczną lub proliferację.
Musi również spełniać wymagania procesu. Może to obejmować adaptację do zawiesiny lub krótsze czasy podwojenia w warunkach bez surowicy. Edycje genów, formułowanie pożywki i kompatybilność z bioreaktorem muszą być testowane jako jeden system, a nie jako oddzielne części.


